Практикум 3. Сравнительный анализ канонической ДНК и стеблей тРНК
В работе использовались программы пакета 3DNA, Bash и PyMOL.
Задание 1. Построение A-, B- и Z-форм ДНК
С помощью программы fiber пакета 3DNA были построены
три модели дуплекса ДНК с одинаковой последовательностью,
но в разных конформациях: A-, B- и Z-формах.
Полученные структуры сохранены в формате PDB.
A-ДНК образует правую спираль и имеет более компактную геометрию по сравнению с B-формой.
B-ДНК также является правой спиралью и соответствует наиболее привычной канонической форме двойной спирали.
Z-ДНК отличается левым направлением закручивания и характерным зигзагообразным ходом сахарофосфатного остова.
Задание 2. Сравнение модельной и экспериментальной B-ДНК
1. Сравнение структур
Для сравнения была выбрана B-форма ДНК.
Модельная структура gatc-b.pdb
была сопоставлена с экспериментальной структурой 1BNA.
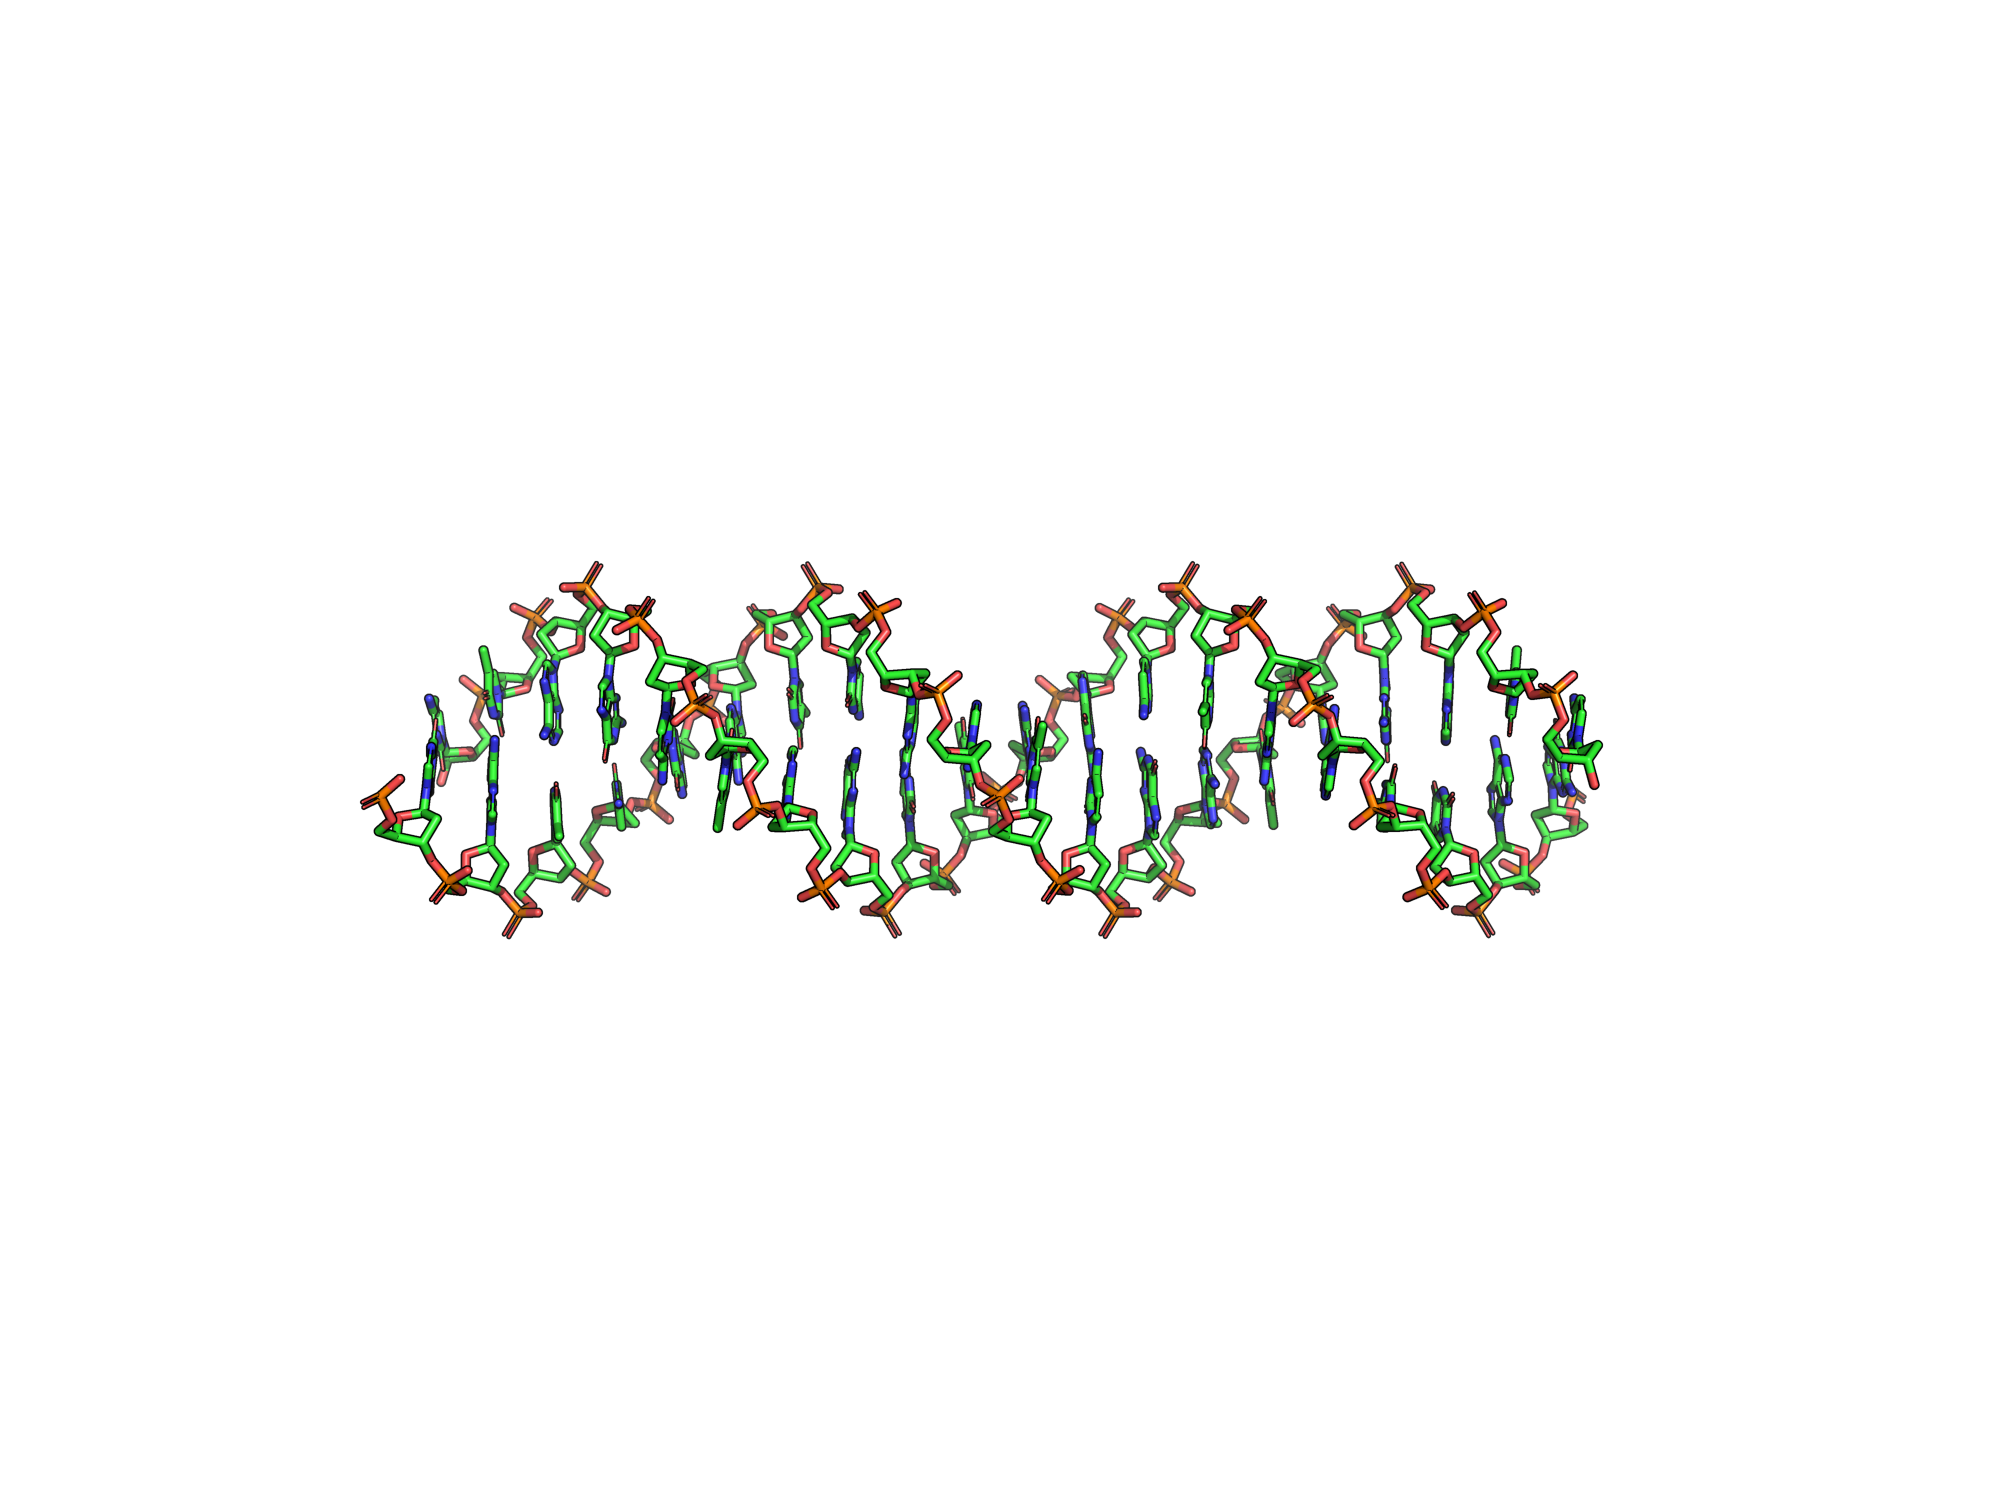
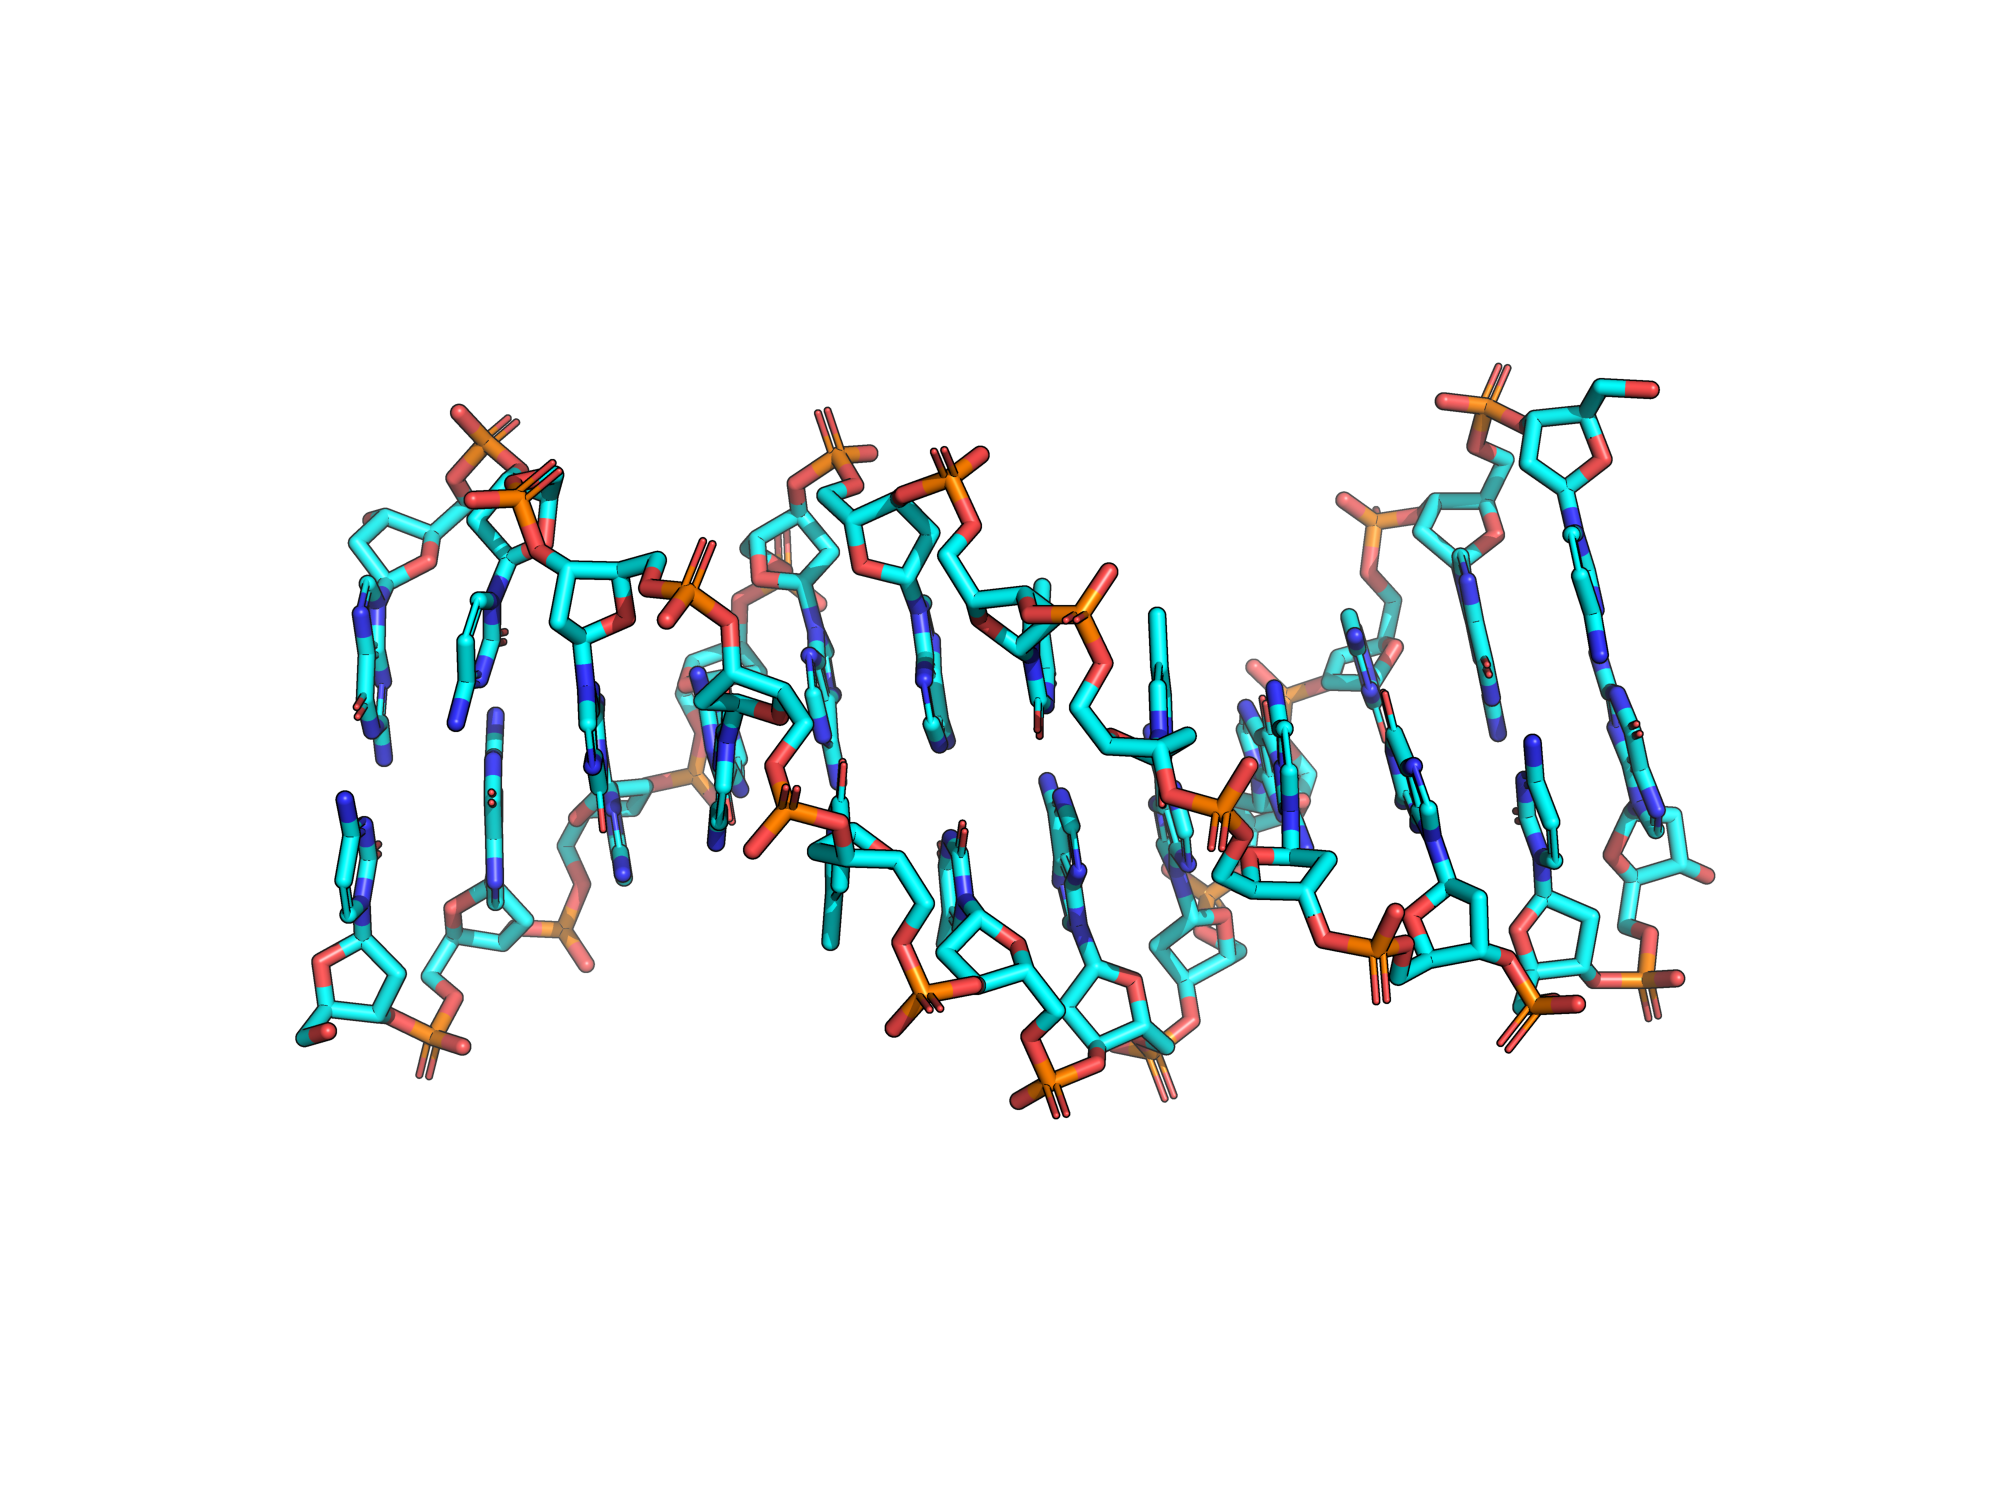
Обе структуры имеют общий план строения B-ДНК: две антипараллельные цепи образуют правую двойную спираль, азотистые основания располагаются внутри, а сахарофосфатный остов проходит снаружи. В обеих структурах различимы большая и малая бороздки.
Сгенерированная структура более регулярная и близка к идеализированной геометрии B-ДНК. Экспериментальная структура 1BNA выглядит менее строго симметричной: заметны небольшие локальные отклонения положения нуклеотидов и изгибы остова. Такие различия ожидаемы, поскольку модель строится по идеальным параметрам, а 1BNA получена из реального экспериментального объекта.
2. Большая и малая бороздки экспериментальной ДНК
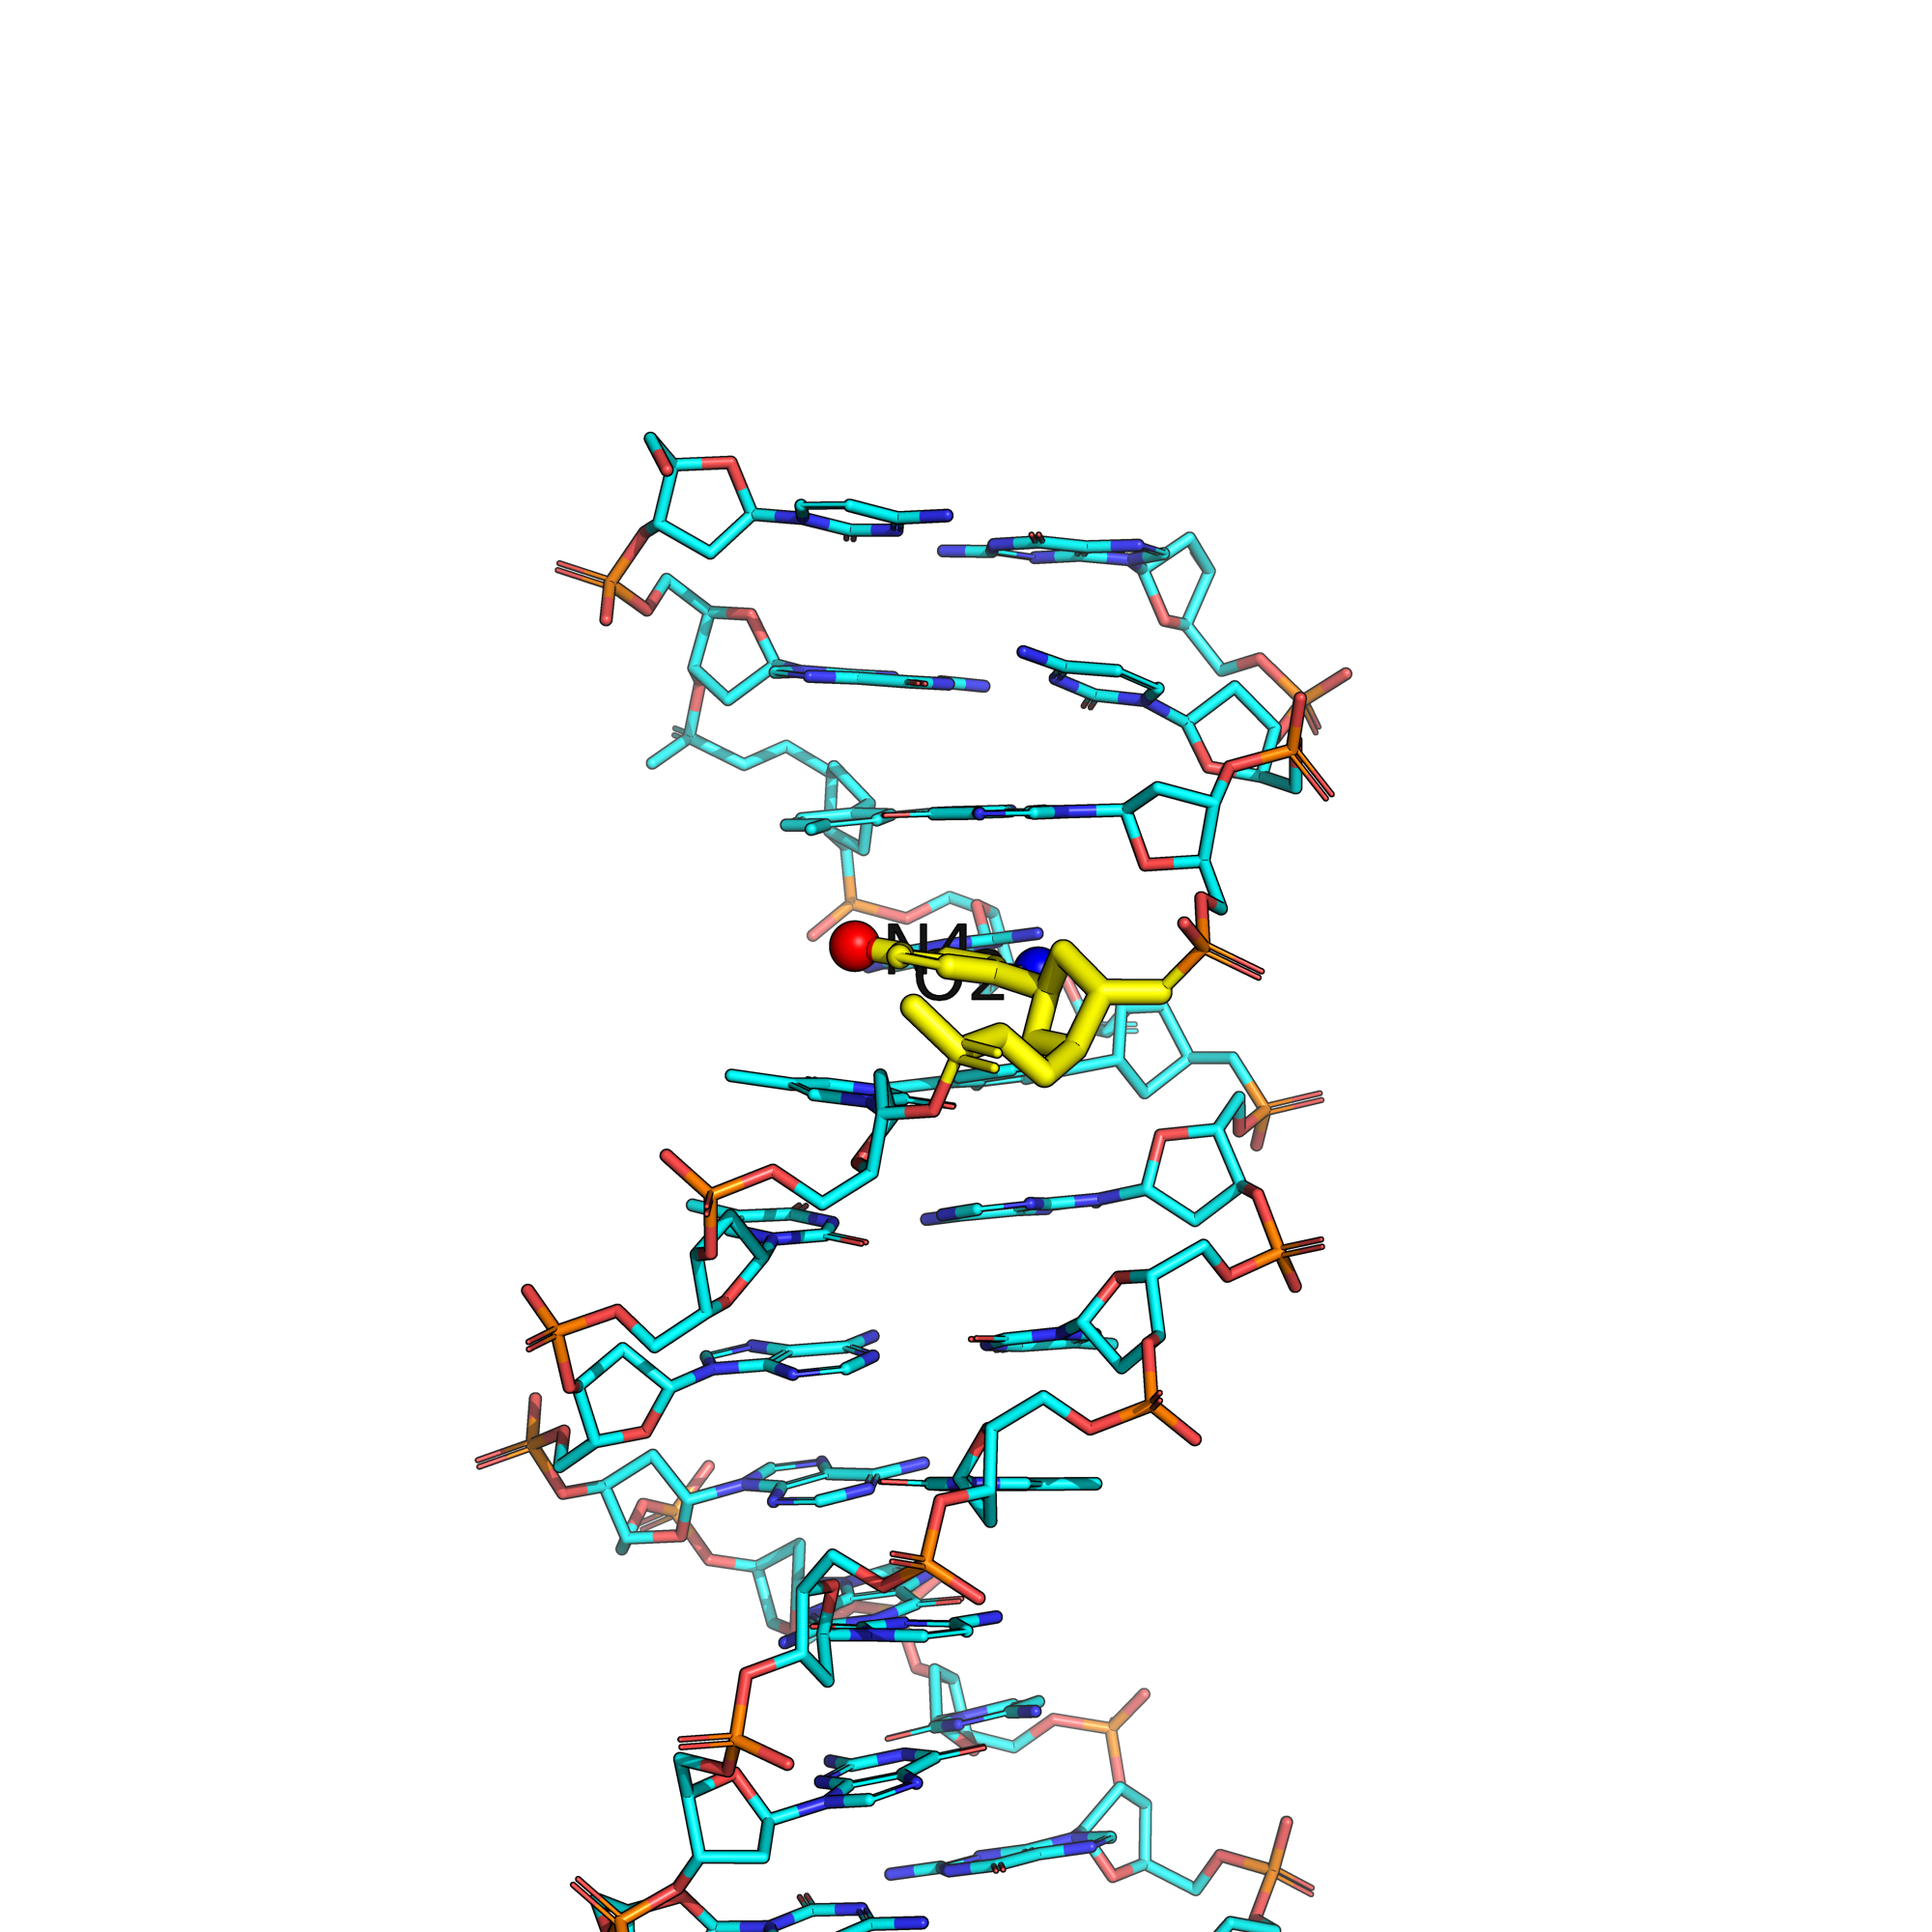
Далее анализировалась только экспериментальная структура 1BNA. В ней визуально были определены большая и малая бороздки.
3. Атомы цитозина, обращённые к бороздкам
Для анализа был выбран цитозин DC A9. Комплементарным ему основанием является гуанин DG B16. Атомы цитозина, расположенные со стороны большой бороздки, окрашены красным, со стороны малой бороздки — синим.
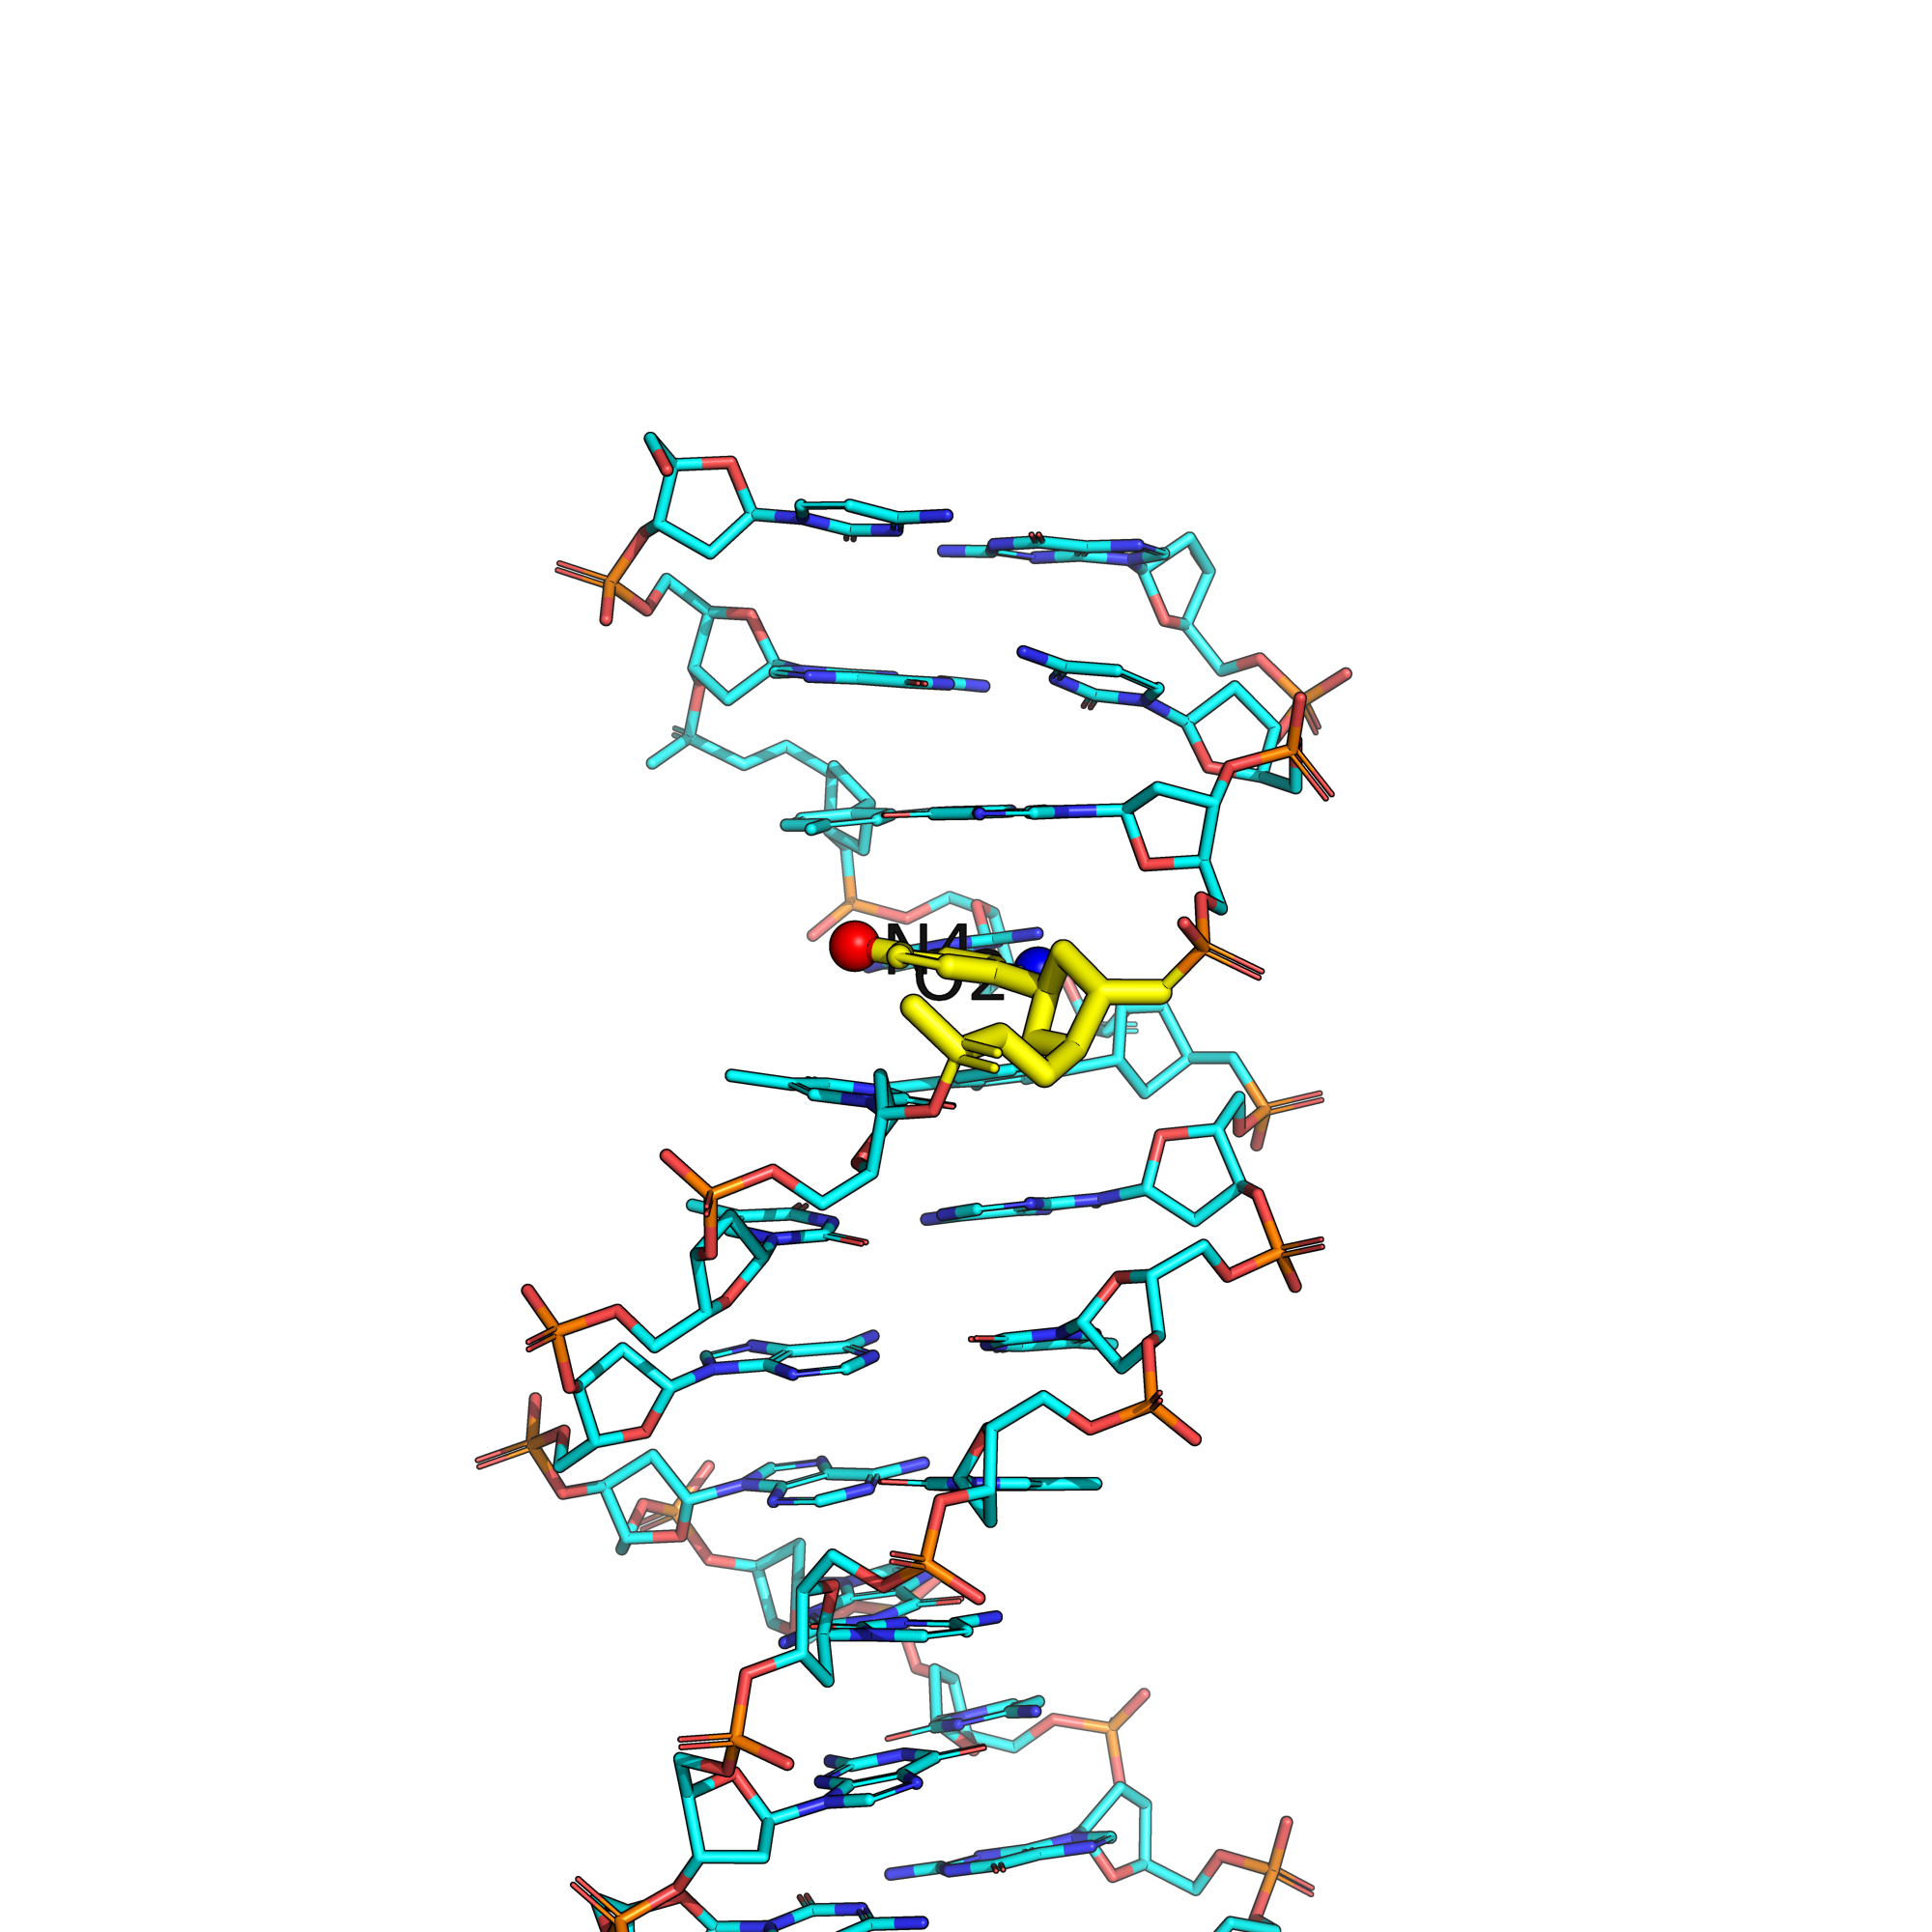

В сторону большой бороздки обращены атомы: C9.C4, C9.N4, C9.C5, C9.C6.
В сторону малой бороздки обращены атомы: C9.N1, C9.C2, C9.O2, C9.N3.
Наиболее наглядные ориентиры — атом N4 со стороны большой бороздки и атом O2 со стороны малой бороздки. Атомы N1 и N3 находятся ближе к границе соответствующего края основания. N3 расположен на Watson–Crick-крае основания и участвует в образовании пары G·C, а N1 находится вблизи места присоединения основания к дезоксирибозе. Поэтому N1 и N3 можно рассматривать как пограничные атомы.
4. Сравнение геометрических характеристик A-, B- и Z-ДНК
Шаг спирали и ширина бороздок оценивались в PyMOL по расстояниям между выбранными атомами фосфора P. Для шага спирали брались атомы одной цепи, разделённые числом нуклеотидов, соответствующим одному полному витку.
| Характеристика | A-форма | B-форма | Z-форма |
|---|---|---|---|
| Тип спирали | правая | правая | левая |
| Шаг спирали, Å | ≈ 28.0 | ≈ 33.8 | ≈ 43.5 |
| Число оснований на виток | 11 | 10 | 12 |
| Ширина большой бороздки, Å |
≈ 16.8
P: A13 — B30 |
≈ 17.2
P: A12 — B26 |
≈ 18.3*
P: A6 — B32 |
| Ширина малой бороздки, Å |
≈ 8.0
P: A3 — B32 |
≈ 11.7
P: A10 — B35 |
≈ 9.9
P: A13 — B32 |
* У Z-ДНК большая бороздка выражена значительно слабее, чем у A- и B-ДНК.
Полученные значения показывают, что три формы ДНК различаются не только направлением закручивания, но и шагом спирали, числом оснований на виток и геометрией бороздок. B-ДНК занимает промежуточное положение по шагу спирали между более компактной A-формой и более растянутой Z-формой.
Задание 3. Упражнение 2
Для анализа структуры тРНК 1QRT использовались программы find_pair и analyze пакета 3DNA. Сначала структура была переведена в старый формат PDB, после чего был проведён поиск пар оснований и их водородных связей.
find_pair -t 1QRT_old.pdb 1QRT.fp
1QRT.fp analyze
Для описания результатов использован файл 1QRT_old.out.
Общий результат. В структуре 1QRT программа 3DNA определила 29 пар оснований. Из них 9 пар имеют неканоническую, non-Watson-Crick, геометрию.
тРНК в анализируемом PDB-файле обозначена цепью B, поэтому номера нуклеотидов ниже приведены для цепи B.
Стебли тРНК
По результатам find_pair можно выделить четыре участка спаренных оснований, соответствующих стеблям тРНК.
| Стебель | Координаты в цепи B | Пары оснований |
|---|---|---|
| Акцепторный | B:2–7 и B:66–71 | G2–C71, G3–C70, G4–C69, G5–C68, U6–A67, A7–U66 |
| T-стебель | B:49–53 и B:61–65 | C49–G65, G50–C64, A51–U63, G52–C62, G53–C61 |
| Антикодоновый | B:37–44 и B:26–33 | A37–U33*, U38–U32*, U39–A31, C40–G30, C41–G29, G42–C28, G43–C27, C44–A26* |
| D-стебель | B:10–12 и B:23–25 | G10–C25, C11–G24, C12–G23 |
Звёздочкой здесь отмечены пары с неканонической геометрией. Всего в четырёх указанных участках находится 22 пары оснований: 6 + 5 + 8 + 3 = 22.
Структура водородных связей
В файле 1QRT_old.out в разделе Detailed H-bond information, для каждой пары указаны взаимодействующие атомы и расстояния между ними.
Например, в обычной паре G2–C71 обнаружены три контакта: G(O6)–C(N4) = 2.68 Å, G(N1)–C(N3) = 2.87 Å и G(N2)–C(O2) = 2.91 Å.
В паре U6–A67 обнаружены два контакта: U(N3)–A(N1) = 2.67 Å и U(O4)–A(N6) = 2.95 Å.
Неканонические пары
Структура содержит 9 non-Watson-Crick пар. В выводе программы такие пары отмечены символами **.
| № в 1QRT_old.out | Пара | Водородные контакты |
|---|---|---|
| 12 | U54–A58 | O2–N6 = 2.63 Å; N3–N7 = 3.01 Å |
| 13 | U55–G18 | O2–N2 = 2.65 Å |
| 14 | A37–U33 | N6–O2 = 3.54 Å |
| 15 | U38–U32 | O4–N3 = 3.14 Å |
| 21 | C44–A26 | O2···N1 = 3.48 Å; N3–N6 = 3.29 Å |
| 25 | A13–A45 | N6–N1 = 3.16 Å; N1–N6 = 3.01 Å |
| 26 | A14–A21 | N6–N3 = 3.10 Å; N1–O2′ = 3.02 Å |
| 27 | G15–C48 | N1–O2 = 2.80 Å; N2–N3 = 2.67 Å |
| 29 | U46–U47 | O3′···N1 = 3.46 Å; O2′–N3 = 2.84 Å; O2···O4 = 3.40 Å |
Неканоническая пара не обязательно состоит из некомплементарных оснований. Например, U54–A58, A37–U33 и G15–C48 имеют обычный комплементарный состав U–A, A–U или G–C, но расположение оснований и система контактов отличаются от классической Watson–Crick-геометрии.
Дополнительные пары вне стеблей
После исключения четырёх стеблей остаётся 7 пар оснований, которые не входят туда.
| № | Пара | Контакты |
|---|---|---|
| 12 | U54–A58 | O2–N6 = 2.63 Å; N3–N7 = 3.01 Å |
| 13 | U55–G18 | O2–N2 = 2.65 Å |
| 25 | A13–A45 | N6–N1 = 3.16 Å; N1–N6 = 3.01 Å |
| 26 | A14–A21 | N6–N3 = 3.10 Å; N1–O2′ = 3.02 Å |
| 27 | G15–C48 | N1–O2 = 2.80 Å; N2–N3 = 2.67 Å |
| 28 | G19–C56 | O6–N4 = 2.61 Å; N1–N3 = 2.55 Å; N2–O2 = 2.46 Å |
| 29 | U46–U47 | O3′···N1 = 3.46 Å; O2′–N3 = 2.84 Å; O2···O4 = 3.40 Å |
Наиболее очевидными дальними контактами, то есть контактами между удалёнными участками последовательности, являются: U55–G18, A13–A45, G15–C48 и G19–C56. Именно их можно особенно выделить как контакты, участвующие в стабилизации третичной укладки тРНК.
Оставшиеся пары U54–A58, A14–A21 и U46–U47 тоже находятся вне стеблей и образуют дополнительные водородные контакты, но являются более локальными.
К комплементарным парам вне стеблей относятся U54–A58, G15–C48 и G19–C56. При этом U54–A58 и G15–C48 имеют неканоническую геометрию, а G19–C56 является обычной Watson–Crick-парой.
Задание 3. Упражнение 1
С помощью пакета 3DNA были определены торсионные углы нуклеотидов структуры тРНК 1QRT и проведено сравнение полученной структуры с A-, B- и Z-формами ДНК.
Торсионные углы
В файле приведены семь торсионных углов: α, β, γ, δ, ε, ζ и χ. Первые шесть описывают конформацию сахарофосфатного остова, а χ показывает положение азотистого основания относительно сахара.
| Угол | Атомы, которыми он задаётся |
|---|---|
| α | O3′(i−1)–P–O5′–C5′ |
| β | P–O5′–C5′–C4′ |
| γ | O5′–C5′–C4′–C3′ |
| δ | C5′–C4′–C3′–O3′ |
| ε | C4′–C3′–O3′–P(i+1) |
| ζ | C3′–O3′–P(i+1)–O5′(i+1) |
| χ | O4′–C1′–N1–C2 для пиримидинов и O4′–C1′–N9–C4 для пуринов |
Анализ значений торсионных углов
Значения углов в структуре неодинаковы, поскольку тРНК содержит не только регулярные стебли, но также петли и участки изгиба. Тем не менее для большинства исследованных нуклеотидов наблюдается хорошо выраженный общий тип конформации.
| Угол | Наиболее характерные значения в 1QRT |
|---|---|
| α | примерно −100...−30° |
| β | около ±180° |
| γ | примерно 30...70° |
| δ | примерно 70...100° |
| ε | примерно −180...−110° |
| ζ | примерно −100...−40° |
| χ | в основном −180...−130° |
Особенно показателен угол δ. У 55 из 58 рассмотренных нуклеотидов он находится в пределах 70-100°. Такое значение связано с C3′-endo-конформацией сахара и характерно для A-типа спирали.
Конформация рибозы
Также в разделе Sugar conformational parameters. Для каждого нуклеотида программа 3DNA указывает тип puckering рибозы.
| Конформация сахара | Число нуклеотидов | Доля |
|---|---|---|
| C3′-endo | 48 | 82,8 % |
| O4′-endo | 3 | 5,2 % |
| C2′-exo | 3 | 5,2 % |
| C4′-exo | 4 | 6,9 % |
Таким образом, 48 из 58 рибоз (82,8 %) находятся в конформации C3′-endo. При этом C2′-endo, характерная прежде всего для B-формы ДНК, среди этих нуклеотидов вообще не была обнаружена.
Классификация динуклеотидных шагов
В разделе Classification of each dinucleotide step in a right-handed nucleic acid structure программа непосредственно сравнивает геометрию динуклеотидных шагов с A-, B- и TA-подобными формами.
A-подобными программа определила шаги: 1–10, 16–19, 22 и 23 .
Всего обозначение Form = A получили 16 из 28 приведённых в таблице шагов.
Шаги 11, 12, 14, 15, 20, 21 и 24–26 не получили буквенного обозначения формы, а для шагов 13, 27 и 28 параметры не были рассчитаны полностью( так как тРНК имеет петли, изгибы и третичные контакты, поэтому не вся её структура представляет собой регулярную двойную спираль. Для определения формы наиболее важны регулярные стеблевые участки).
При этом в таблице нет ни одного шага, обозначенного B или TA.
Вывод. По результатам анализа 3DNA стебли тРНК 1QRT больше всего похожи на A-форму ДНК. Так как большинство регулярных динуклеотидных шагов, которым 3DNA смогла присвоить каноническую форму, классифицированы как A-подобные; 82,8 % рибоз имеют C3′-endo-конформацию; угол δ почти у всех нуклеотидов находится около 80–90°.
B-форма подходит хуже, поскольку для неё более характерна C2′-endo-конформация сахара и большие значения δ. Z-форма также не соответствует полученным данным: для неё характерна левозакрученная спираль и чередование syn- и anti-конформаций оснований.