Мини-обзор генома бактерии Borrelia parkeri HR1
Borrelia parkeri - патогенная бактерия рода Borrelia и типа Spirochaetota. Настоящая систематика представлена в Таблице 1.Является возбудителем возвратного тифа [1].
Интерес к изучению Borrelia parkeri вызывает её патогенный характер. На данный момент, резервуарами для возвратного тифа служат клещи семейства Argasidae [1], распространенные в Средней Азии, Казахстане, Крыму, Кавказе, Молдове [2]. Кроме того, переносчиками заболевания могут служить Pediculus humanus capitis и Pediculus humanus humanus, в связи с чем, их распространенность может быть увеличена и может носить эпидемиологический характер [1]. Изучение патогена может помочь эффективнее справляться с заболеванием.
Известен факт эпидемии возвратного тифа на территории СССР в 1941-1947 годах [3]. Эпидемия была ликвидирована стабилизацией ситуации в стране, улучшением экономических и бытовых условий, а также распространением антибиотиков.
С ростом резистентности к антибиотикам у представителей рода Borrelia [4] и их большой распространенностью, целесообразным является изучение геномов их представителей для сбора информации о их генетической организации и разработки новых средств борьбы с патогенами.
|
Систематическая группа |
Наименование |
|
Тип |
Spirochaetota |
|
Класс |
Spirochaeta |
|
Отряд |
Spirochaetales |
|
Семейство |
Borreliaceae |
|
Род |
Borrelia |
|
Вид |
Borrelia parkeri |
Был использован полный геном Borrelia parkeri HR1 CP007022.1. Анализ данных был произведен методами функционала электронных таблиц Google sheets, средствами Bash и NCBI [16].
У нашей сборки генома мы обнаружили два класса последовательностей и соответствующие им CDS и последовательности mRNA и tRNA. Результаты представлены в Таблице 2. Первый представляет из себя собственно линейную хромосому, вторая же - не локализованные скаффолды линейной плазмиды lp150. Подобная сегментация генома распространена не только у Borrelia parkeri, но, судя по всему, возникла давно и широко распространена среди рода Borrelia. С высокой долей вероятности эта и аналогичные плазмиды являются профагами.[7]
Таблица 2. Данные о последовательности [16]
|
Геномная принад- лежность |
Тип послед-ти |
Название хр-мы |
Кодирующие послед-ти |
нкРНК |
рРНК |
тРНК |
тмРНК |
|
NZ_ CP007022.1 |
Хромосома |
Неназвана |
832 |
2 |
3 |
32 |
1 |
|
NZ_ CP007036.1 |
Нелокал-ый скаффолд плазмиды |
lp150 |
114 |
0 |
0 |
0 |
0 |
С задаче изучить природу плазмиды мы провели дополнительный поиск в NCBI инструментом blastn, по последовательностям PBSX family phage terminase large subunit, BlyB и BlyA family proteins. Однако, поиск не показал наличие родственных фаговых последовательностей.
Продолжая поиски возможного предка плазмиды, мы провели множественные выравнивания и филогенетический анализ скаффолдов плазмиды lp150. Результаты показали, что скаффолды плазмиды lp150 характерны родственным для Borrelia parkeri видам в рамках рода Borrelia (Borrelia turicatae, Borrelia hermsii, Borrelia miyamotoi). Филогенетическое древо по lp150 приложено в рисунке 1 сопроводительные материалы.
Дальнейший филогенетический анализ позволил выявить базальную ветвь эволюции данной плазмиды: Borreliella tachiglossi (еще не была кольтивируема) для max seq.difference <0,75 и Borrelia burgdorferi для max seq.difference >0,75. Тем самым мы можем сказать, что подобная организация генома характерна, как минимум, ветви рода Borrelia патогенных бактерий, для ветви “Возбудителей болезни Лайма”.
Пользуясь известными аннотациями и исследованиями по известным последовательностям скаффолдов lp150, мы подтвердили профаговую природу плазмиды. Чему свидетельствуют последовательности, характерные фагам (такие как PBSX family phage terminase large subunit), факторы патогенности (такие как CRASP lipoprotein) и некоторые жизненно важные белки (на пример Ribonucleoside- diphosphate reductase). Однако большая часть последовательностей представляют из себя DUF (18 штук) или не имеют известной функции. Дополнительная информация о изученных последовательностях находится в таблице 1 сопроводительных материалов.. Основная плазмида же является носителем генов домашнего хозяйства, патогенности (характерных в общем для группы Borrelia и выше) и т.д..
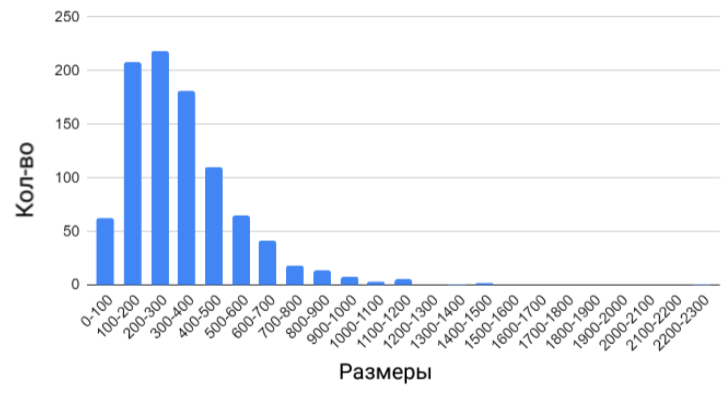
Рис. 1. Распределение длин аминокислотных последовательностей [16].
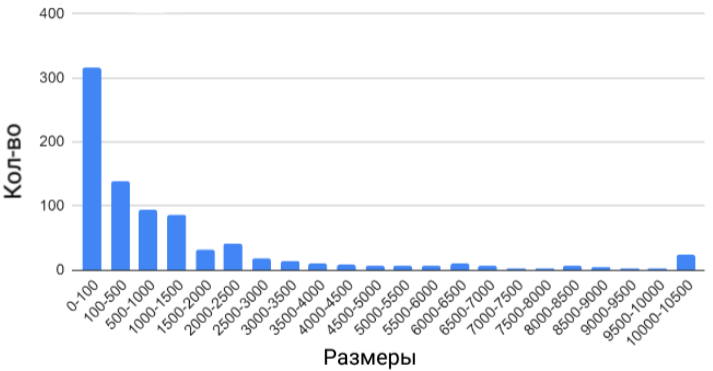
Рис. 2. Распределение длин некодирующих участков [16].
Средствами Google sheets мы провели измерение длин некодирующих участков между CDS и представили распределение на рисунке 2.
Можно заметить, что сравнительно небольших межгенных промежутков, от 1 и до 100 нуклеотидов, больше чем любой другой группы промежутков. Однако не мало и последовательностей длины больше 1000 и 10000 п.н.. Данные последовательности могут служить регуляторными участками.
Кроме того, из приведенных ниже аналогичных результатов анализа, мы можем сделать вывод, что гигантских межгенных расстояний пропорционально больше в lp150, чем в основной плазмиде. Как показано на рисунках 3 и 4.
Мы считаем, что для выяснения причин этого необходимо провести дополнительный анализ.
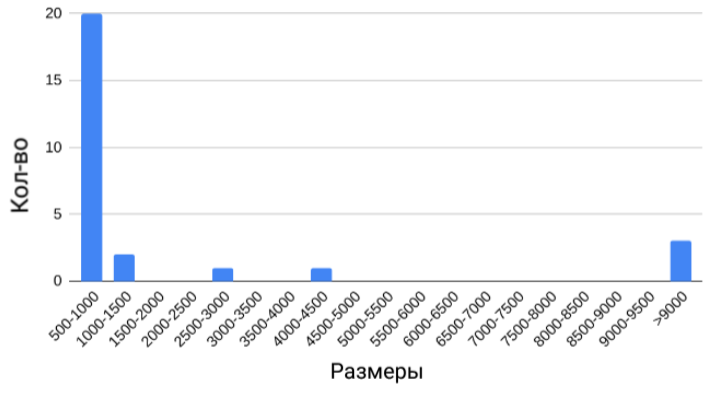
Рис. 3. Распределение длин некодирующих участков для lp150 [16].
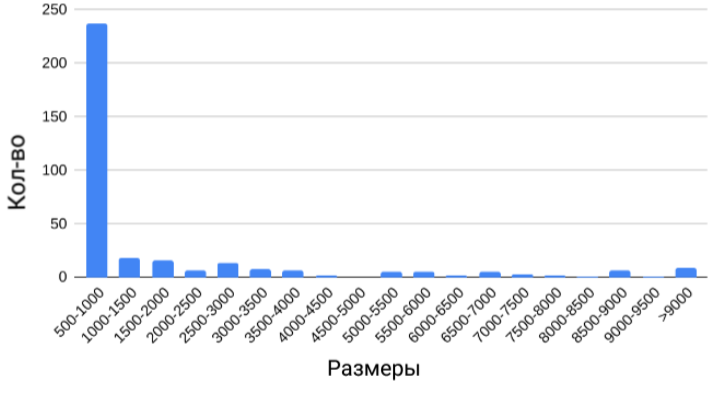
Рис. 4. Распределение длин некодирующих участков для хромосомы [16].
Таблица 1. Функции CDS плазмиды lp150
| Продукт кодирующие последовальностей | Функция транслируемого продукта |
| p23 protein | Вовлечен в биогенез COPI и COPII-покрытых везикул, транспортировку мембраносвязанных белков через секреторную систему, формирование структуры эндоплазматического ретикулума и аппарата Гольджи [6]. |
| Plasmid maintenance protein | Судя по всему, участвует в поддержании и авторепликации плазмид [7]. |
| PBSX family phage terminase large subunit | Является большой субъединицы фаговой терминазы. Терминаза участвует в расщеплении контамерных фаговых ДНК до фрагментов длиной в один повтор [8]. |
| ParA family protein | Необходим для разделения плазмид, обеспечивая правильное распределение вновь реплицированных плазмид по дочерним клеткам во время клеточного деления. |
| FAD-dependent thymidylate synthase | Катализирует образование dTMP и тетрагидрофолата из dUMP и метилентетрагидрофолата, используя флавиновый кофермент в качестве источника восстановительных эквивалентов, получаемых из NADPH. |
| CRASP lipoprotein | Связывает регуляторы системы комплемента хозяина с внешней поверхностью спирохеты. Благодаря чему бактерия остается незамеченной первичным иммунитетом хозяина [10]. |
| Ribonucleoside- diphosphate reductase | Образование дезоксирибонуклеотидов из рибонуклеотидов. |
| Chromosome partitioning protein | Способствует точному разделению хромосом и плазмид [11]. |
| BlyB и BlyA family proteins | Формируют систему холинов (небольшие мембранные белки, контролирующие процесс лизиса клетки, формирования отверстий в клетке) [12]. |
| Bdr family repetitive protein | Предполагается, что направляют иммунный ответ в сторону менее защитной Т-клеточно-независимой активации В-клеток [15]. |
| p35 borrelia protein | Функция неясна, однако его экспрессия индуцируется во время кормления клеща-вектора и поддерживается на протяжении всего периода инфекции позвоночного хозяина [13] [14]. |

Рис. 1. Филогенетическое дерево построенное по последовательности lp150, построенное встроенными инструментами BLAST методом максимальной парсимонии.