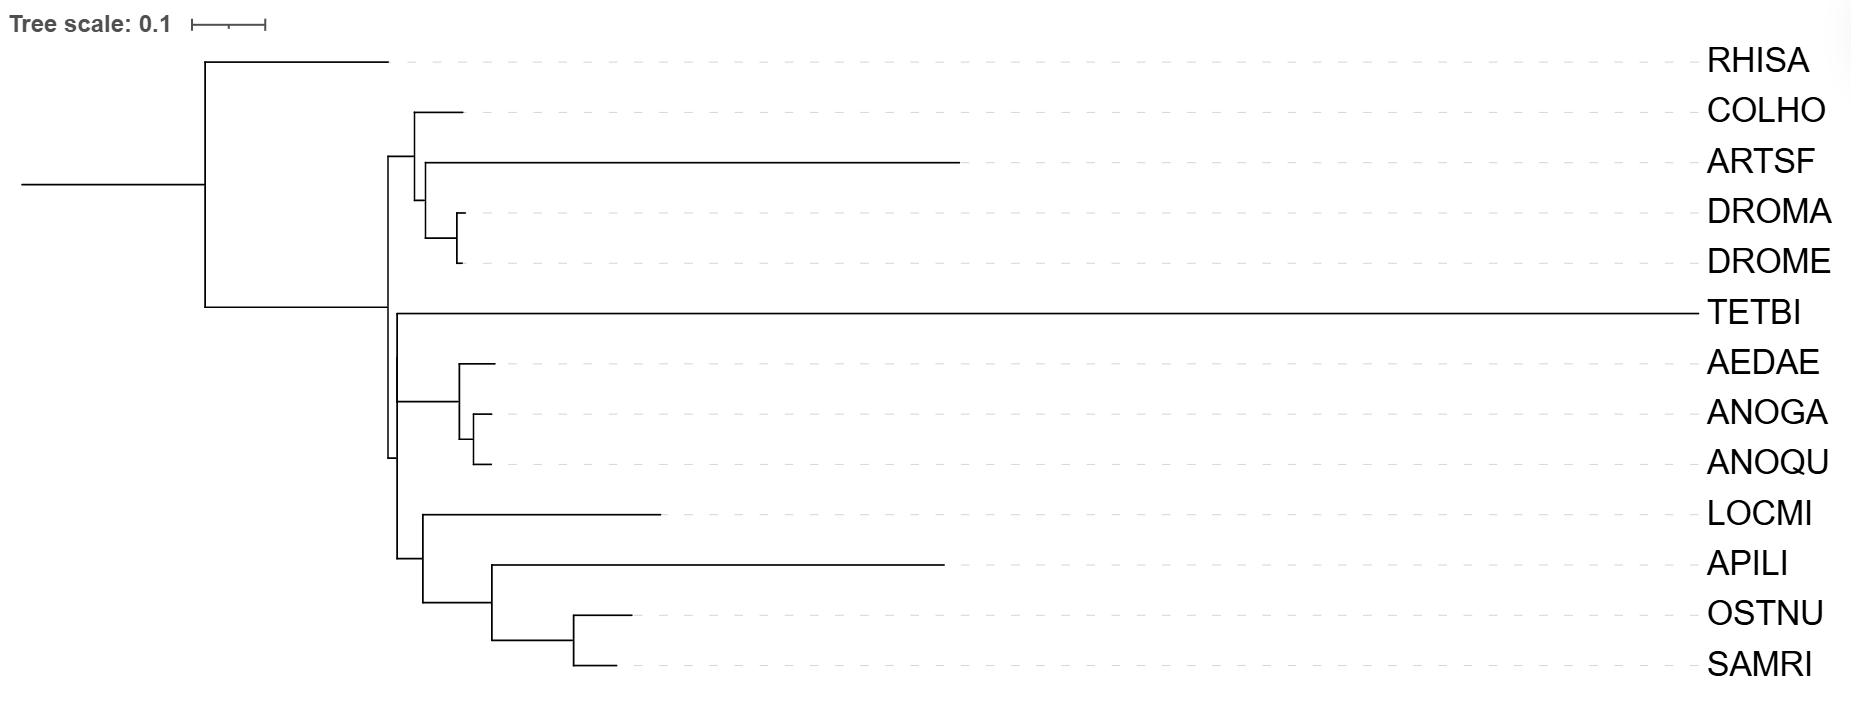
Дерево реконструировано по генам малой РНК митохондриальных рибосом (12S rRNA). Последовательности вырезаны из полных митохондриальных геномов и выровнены программой MUSCLE. Построение выполнено программой IQ-TREE с моделью JC (Jukes-Cantor) и алгоритмом максимального правдоподобия (ML). Дерево укоренено методом средней точки. Бутстреп не проводился.
На дереве по 12S рРНК правильно восстановлены группы DROME+DROMA, AEDAE+(ANOQU, ANOGA) и Lepidoptera (OSTNU, SAMRI). Однако монофилия Diptera нарушена: COLHO отделяется от остальных двукрылых. Положение ARTSF, TETBI и APILI также не соответствует эталонному дереву.
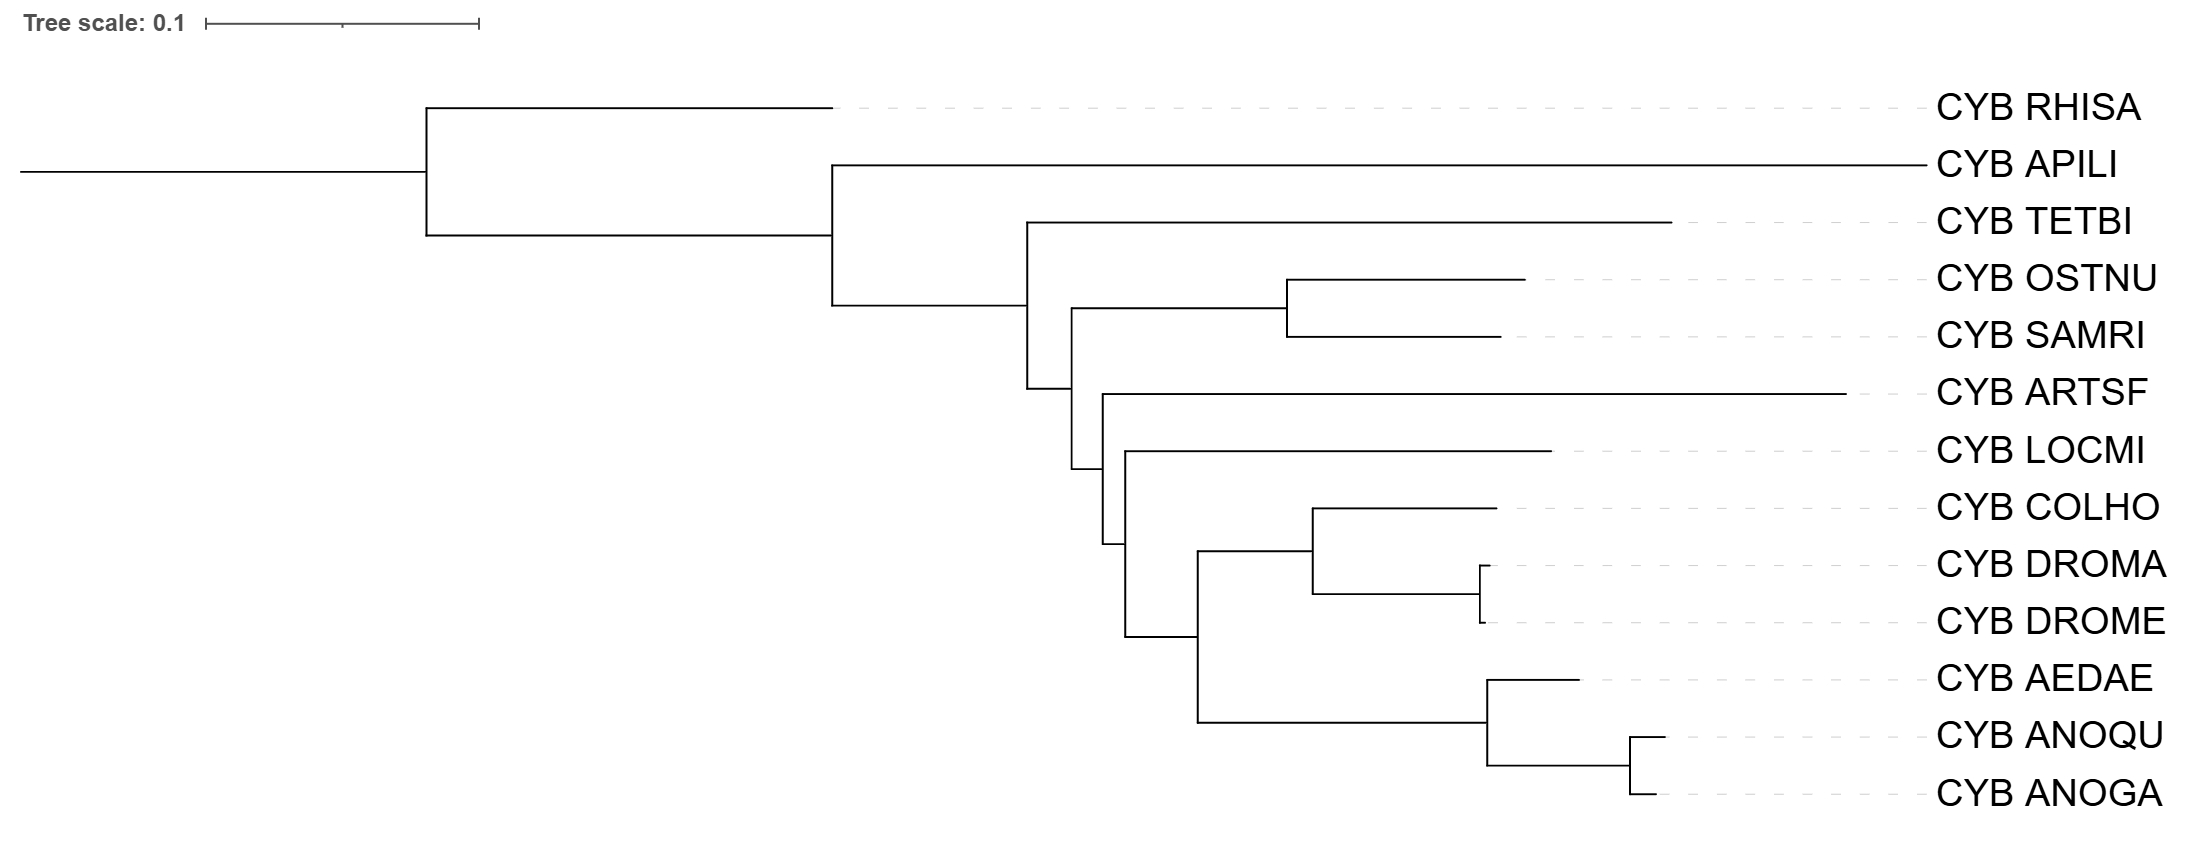
Сравнение деревьев по 12S рРНК и по цитохрому B показывает, что основные клады двукрылых (DROME+DROMA, AEDAE+(ANOQU+ANOGA)) сохраняются во всех реконструкциях. Однако топология в средней части различается, что объясняется разной скоростью эволюции этих генов и различными моделями, использованными при реконструкции.
Больше ошибок в дереве по 12S rRNA.Так как в дереве по CYB правильно восстановлены монофилетические группы Diptera, Brachycera, Culicidae и Lepidoptera. В то время как по 12S rRNA сохраняются только Culicidae, Lepidoptera и пара DROME+DROMA, но нарушена монофилия Diptera: COLHO отделяется от остальных двукрылых. Есть и ошибки положения других таксонов.
В качестве внешней группы выбран Epiperipatus biolleyi (EPIBI), относящийся к Onychophora. Этот вид не принадлежит к Arthropoda, но является их близким эволюционным родственником.
К исходным 13 последовательностям 12S рРНК была добавлена последовательность EPIBI. По новому выравниванию построено дерево программой IQ-TREE методом максимального правдоподобия (ML) с использованием модели JC. Дерево укоренено по ветви EPIBI.

Внешняя группа EPIBI правильно отделяется от исследуемых членистоногих. Сохраняются правильно восстановленные клады Lepidoptera, Culicidae и пара DROME+DROMA. Однако глубокие ветвления не соответствуют эталонной таксономии: TETBI отделяется раньше RHISA, ARTSF ошибочно объединяется с COLHO, а монофилия Diptera нарушена. Таким образом, добавление внешней группы позволило укоренить дерево, но не устранило ошибки филогенетической реконструкции.
По сравнению с исходным деревом по 12S рРНК топология изменилась: RHISA перестала занимать базальное положение, раньше остальных членистоногих отделяется TETBI, а ARTSF образует кладу с COLHO. Внешняя группа EPIBI расположена отдельно от членистоногих, поэтому укоренение по ней выполнено корректно. Однако полученная топология вблизи корня не соответствует эталонной филогении. Таким образом, использование внешней группы не позволило восстановить правильное расположение базальных ветвей.

Рис. 4. Филогенетическое дерево по нуклеотидным последовательностям 12S рРНК 14 видов, реконструированное программой FastME (модель F84, алгоритм BioNJ, 100 бутстрэп-реплик, укоренение по EPIBI).
На дереве с внешней группой EPIBI проведён бутстрэп-анализ методом FastME (100 реплик). Высокую поддержку получили клада Culicidae (90), пара ANOGA+ANOQU (78) и пара DROME+DROMA (72). При этом некоторые глубокие ветвления имеют низкую поддержку (0–21). Монофилия Diptera и Lepidoptera нарушена, а положение RHISA не соответствует эталонной таксономии. Таким образом, близкородственные группы восстановлены надёжнее, чем большинство глубоких филогенетических отношений.