Практикум 11
Гомология и выравнивание. Домены. JalView
1–2. Выбранное семейство доменов
Проверка домена на соответствие условиям
- Условие 1 (более 20 последовательностей в seed): 30
- Условие 2 (хотя бы 3 структуры): 13
Формальные данные (Таблица 11-1)
| AC pfam | ID pfam | #SEED | #All | #SW | #architectures | #3D |
|---|---|---|---|---|---|---|
| PF00310 | GATase_2 | 30 | 20k | 26 | 142 | 13 |
Таксономия (Таблица 11-1, продолжение)
| Taxonomy | #eukaryota | #archaea | #bacteria |
|---|---|---|---|
| Число всех белков с доменом семейства по супер-царствам. | 4392 | 397 | 15721 |
Описание функции и 3D-структуры
Главная биологическая задача домена - гидролизовать амидогруппу молекулы глутамина с образованием глутамата. Играет очень важную роль в метаболизме огромного числа организмов, так как необходим для синтеза пуринов (!!!), аминосахаров, аспарагинов, для усвоения аммиака и тп. Структурно: роль главного атакующего нуклеофила выполняет определенный остаток цистеина, находящийся строго на N-конце зрелого домена. Интересно и то, что образующийся аммиак токсичен и летуч, поэтому белки с этим доменом обычно имеют внутренние "изолированные каналы", по которым аммиак напрямую перетекает из каталитического центра к следующему субстрату, не контактируя с клеточной средой.
Таксономическая распространённость
Домен максимально широко представлен у прокариот, поскольку они зависят от базовых путей ассимиляции азота и быстрого синтеза нуклеотидов. О консервативности домена свидетельствует его встречаемость среди эукариотов - у растений, грибов и животных - в составе сложных метаболических комплексов. Домен есть и среди архей, что подчеркивает его древнее эволюционное происхождение.
Доменные архитектуры
Домен нередко функционирует совместно с синтазными доменами в одной полипептидной цепи с ним для синхронной работы.
3. Описание выравнивания белковых доменов (seed)
Таблица 11-3
| Параметр | Значение | Комментарии / пояснения |
|---|---|---|
| Выравнивание seed | 30 последовательностей, 459 колонок | последовательностей, 459 колонокУказано число последовательностей и число колонок в выравнивании seed, скачанном со страницы семейства в Pfam и открытом в JalView. |
| Максимальный достоверный блок, включающий ВСЕ последовательности (МДБ-all) | 237 - 268 | Указаны номера колонок от — до. Длина блока составляет 32 позиции. Блок полностью без гэпов для всех 30 последовательностей. |
| 100% консервативные колонки в МДБ-all | 237:H, 239:R, 241:S, 242:T, 243:N, 244:T, 246:P, 248:W, 253:P, 255:R, 259:H, 260:N, 261:G, 262:E, 263:I, 264:N, 265:T, 268:G | Указаны консервативные колонки. На всем протяжении этого блока эти позиции абсолютно идентичны (одна и та же аминокислота во всех 30 последовательностях). Граничные позиции блока (237:H и 268:G) строго консервативны. |
| Максимальный достоверный блок, включающий НЕ ВСЕ последовательности (МДБ-notAll) | 268 - 276 | Блок построен для подмножества из первых 14 последовательностей (строки 1–14 в Jalview). Длина блока — 9 позиций. Внутри этой группы нет ни одного гэпа, конец и начало консервативны. |
| 100% консервативные колонки в МДБ-notAll | 268:G, 269:N, 271:N, 272:W, 273:M, 275:A, 276:R | Внутри выбранного подмножества из 14 белков этот короткий блок ультра-консервативен, что четко отделяет эту эволюционную группу от остальных последовательностей ниже по списку. |
| Участок выравнивания, в котором нет никаких достоверных подблоков | 137 - 161 | Участок длиной 25 позиций на вкладке Non_evolutionary_zone. Полностью отсутствует гомология. Из-за обилия хаотичных гэпов и пестрого аминокислотного состава очевидно, что выравнивание в этой зоне носит исключительно математический характер и не отражает реальный ход эволюции. |
Скриншоты выравниваний
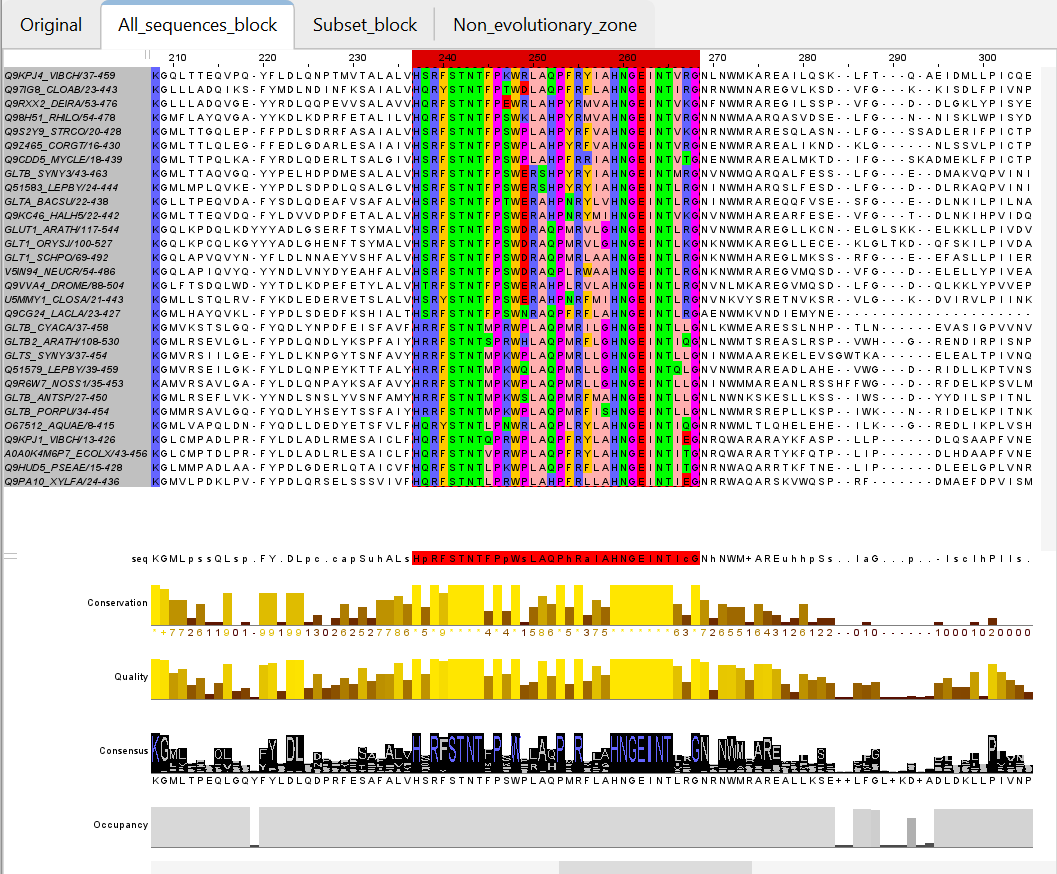
Рис. 1. Максимальный достоверный блок, включающий все последовательности.
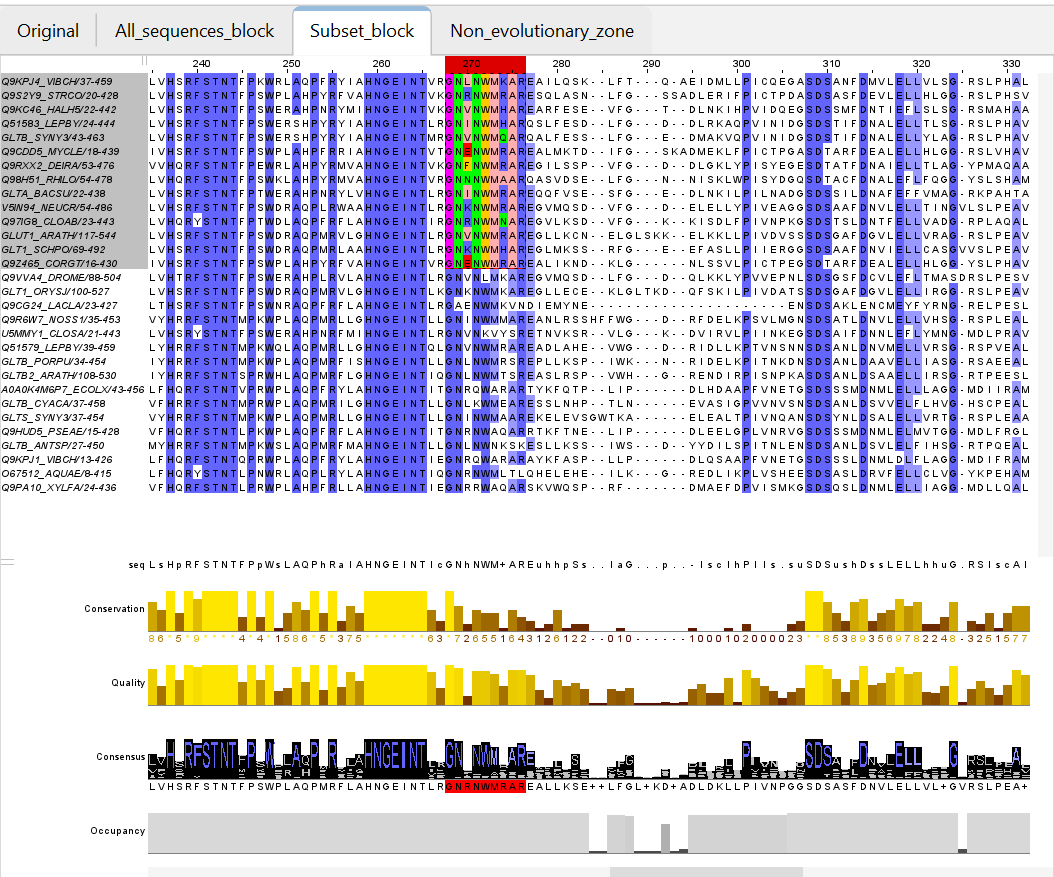
Рис. 2. Блок, включающий фрагменты не из всех последовательностей.
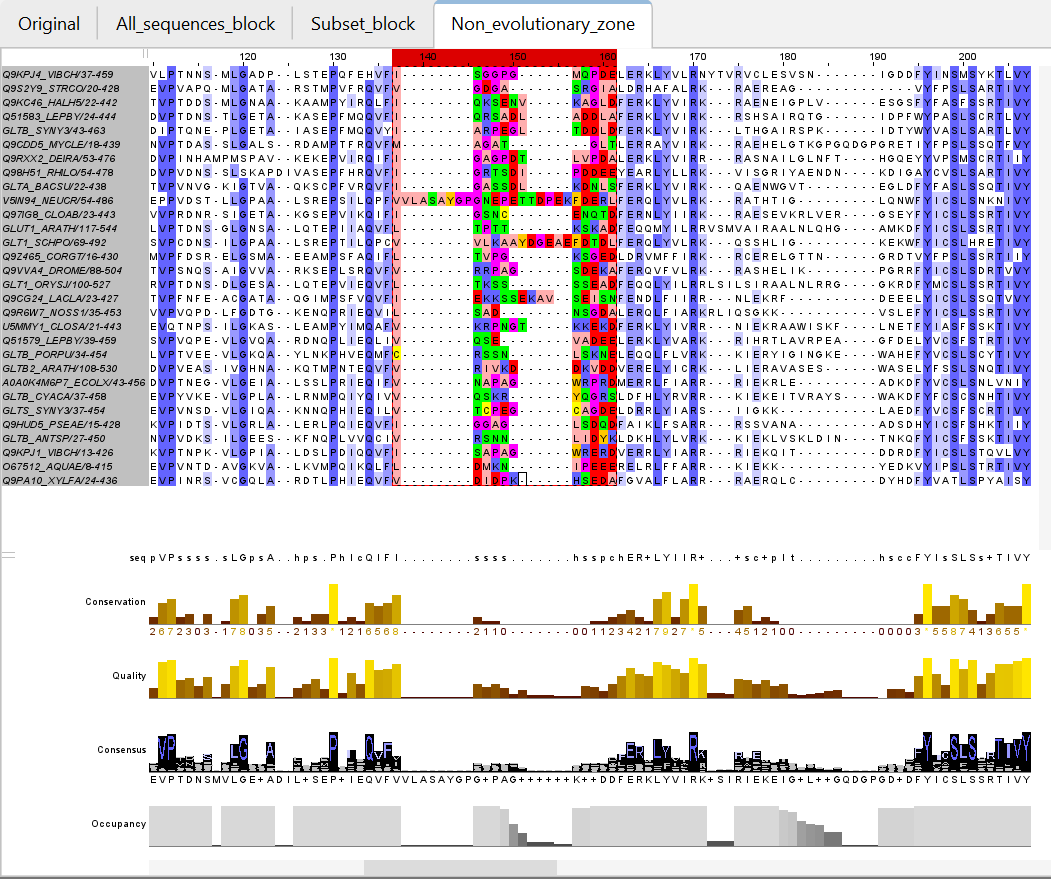
Рис. 3. Участок, на котором нет оснований считать выравнивание эволюционным.
Проект Jalview
4. Карта локального сходства (dotplot)
Таблица 11-5
| Параметр | Информация | Комментарии / пояснения |
|---|---|---|
| Доменная архитектура 1 | PF00310 – PF04898 – PF01645 – PF01493 | GATase_2 – Glu_syn_central – Glu_synthase – GXGXG |
| Белок с архитектурой 1 | P23225 | Ferredoxin-dependent glutamate synthase (Zea mays), длина 1616 |
| Доменная архитектура 2 | PF00310 – PF04898 – PF01645 – PF01493 – PF14691 – PF07992 | GATase_2 – Glu_syn_central – Glu_synthase – GXGXG – Fer4_20 – Pyr_redox_2 |
| Белок с архитектурой 2 | Q03460 | Glutamate synthase [NADH] (Medicago sativa), длина 2194 |
Карта локального сходства
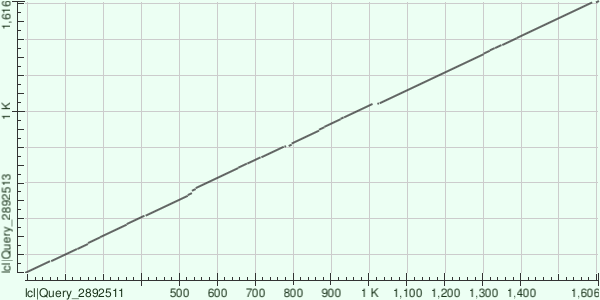
Рис. 4. Карта локального сходства двух белков с разной доменной архитектурой (P23225 и Q03460).
Комментарии
На карте локального сходства видна чёткая сплошная диагональ в области первых ~1616 аминокислотных остатков, что соответствует общей части двух белков — доменам GATase_2, Glu_syn_central, Glu_synthase и GXGXG, которые у обоих белков идут в одинаковом порядке и являются гомологичными, тогда как в C-концевой области (от ~1616 до 2194 а.к.о.) диагональ отсутствует, потому что белок Q03460 длиннее и содержит два дополнительных домена — Fer4_20 и Pyr_redox_2, которых нет у P23225, что наглядно подтверждает гомологию в общей части и различие доменных архитектур в C-конце, связанное с использованием NADH в качестве донора электронов у Q03460 и ферредоксина у P23225.