Семестр 3. Практикум 4. Предсказание вторичной структуры заданной тРНК и анализ ДНК-белкового комплекса
Содержание
1. Предсказание вторичной структуры тРНК (1N78)
Заданная тРНК — 1N78 (тРНКGlu, Thermus thermophilus, комплекс с глутамил-тРНК-синтетазой). Реальная вторичная структура для сравнения взята из результатов find_pair/analyze, полученных в Практикуме 2 (файл 1n78_old.out). Предсказания строились по последовательности цепи тРНК:
>1N78_tRNA_Glu
GGCCCCAUCGUCUAGCGGUUAGGACGCGGCCCUCUCAAGGCCGAAACGGGGGUUCGAUUCCCCCUGGGGUCACCA
1.1. Поиск инвертированных повторов (einverted)
Программа einverted (пакет EMBOSS) ищет в последовательности самокомплементарные (инвертированные) участки — потенциальные шпильки. При пороге по умолчанию (threshold 50) результатов нет, пришлось его понижать.
einverted -sequence 1n78.seq -gap 12 -threshold 10 -match 3 -mismatch -3 -outfile outfile2_1N78 -outseq seqout2_1N78Результат: outfile2_1N78.txt.
Найдено 2 инвертированных повтора суммарно на 17 канонических пар: участок 1–9↔31–23 (7 из 9 позиций комплементарны) и участок 34–48↔69–55 (10 из 15). Ни один из них не совпадает по границам ни с одним из четырёх стеблей клеверного листа: einverted ищет самокомплементарность по всей последовательности, не учитывая реальную структуру тРНК.
1.2. Предсказание по алгоритму Зукера (ViennaRNA)
Алгоритм Зукера (ViennaRNA, поиск минимума свободной энергии) ищет оптимальное вложенное сворачивание всей цепи, поэтому лучше подходит для предсказания структуры без псевдоузлов, как у тРНК.
RNA.fold_compound(seq).mfe()
MFE = -35.80 ккал/моль
Структура: (((((((.(((((........)))))(((((.......)))))....(((((.......))))))))))))....
Рисунок 1. Предсказание вторичной структуры тРНК 1N78 по алгоритму Зукера (ViennaRNA).
Таблица 1. Реальная и предсказанная структура тРНК 1N78 (нумерация нативная, по PDB)
| Участок структуры | Позиции по find_pair (реально) | Результат einverted | Результат по алгоритму Зукера |
|---|---|---|---|
| Акцепторный стебель | 5'-501–507-3' 5'-566–572-3' |
– | 5'-501–507-3' 5'-566–572-3' |
| D-стебель | 5'-510–513-3' 5'-522–525-3' |
– | 5'-509–513-3' 5'-522–526-3' |
| Антикодоновый стебель | 5'-526–532-3' 5'-538–544-3' |
– | 5'-527–531-3' 5'-539–543-3' |
| T-стебель | 5'-549–553-3' 5'-561–565-3' |
– | 5'-549–553-3' 5'-561–565-3' |
| Общее число канонических пар нуклеотидов | 23 | 17 | 22 |
Алгоритм Зукера предсказал все четыре стебля клеверного листа: акцепторный и T-стебель совпали с реальными границами точно, D- и антикодоновый стебли сдвинуты на 1 нуклеотид. einverted не нашёл ни одного реального стебля — он ищет самокомплементарность формально, без учёта структуры тРНК.
2. Поиск ДНК-белковых контактов в структуре 1I3J
Для анализа выбран комплекс 1I3J — ДНК-связывающий домен интрон-эндонуклеазы I-TevI (бактериофаг T4) с его ДНК-субстратом. Цепь A — белок (116 остатков), цепи B и C — две нити ДНК (по 21 нт).
2.1. Выделение множеств атомов ДНК
При помощи PyMOL были выделены: множество атомов кислорода 2'-дезоксирибозы (set1), множество атомов кислорода в остатке фосфорной кислоты (set2), множество атомов азота в азотистых основаниях (set3).
set1 = chain B+C and name O3'+O4'+O5'
set2 = chain B+C and name OP1+OP2
set3 = chain B+C and elem N
PyMol скрипт, последовательно показывающий ДНК в wire модели, затем ту же модель с выделенными set1, set2 и set3 и всю структуру.
Также в качестве эксперимента реализована аналогичная логика с использованием библиотеки MolStar.
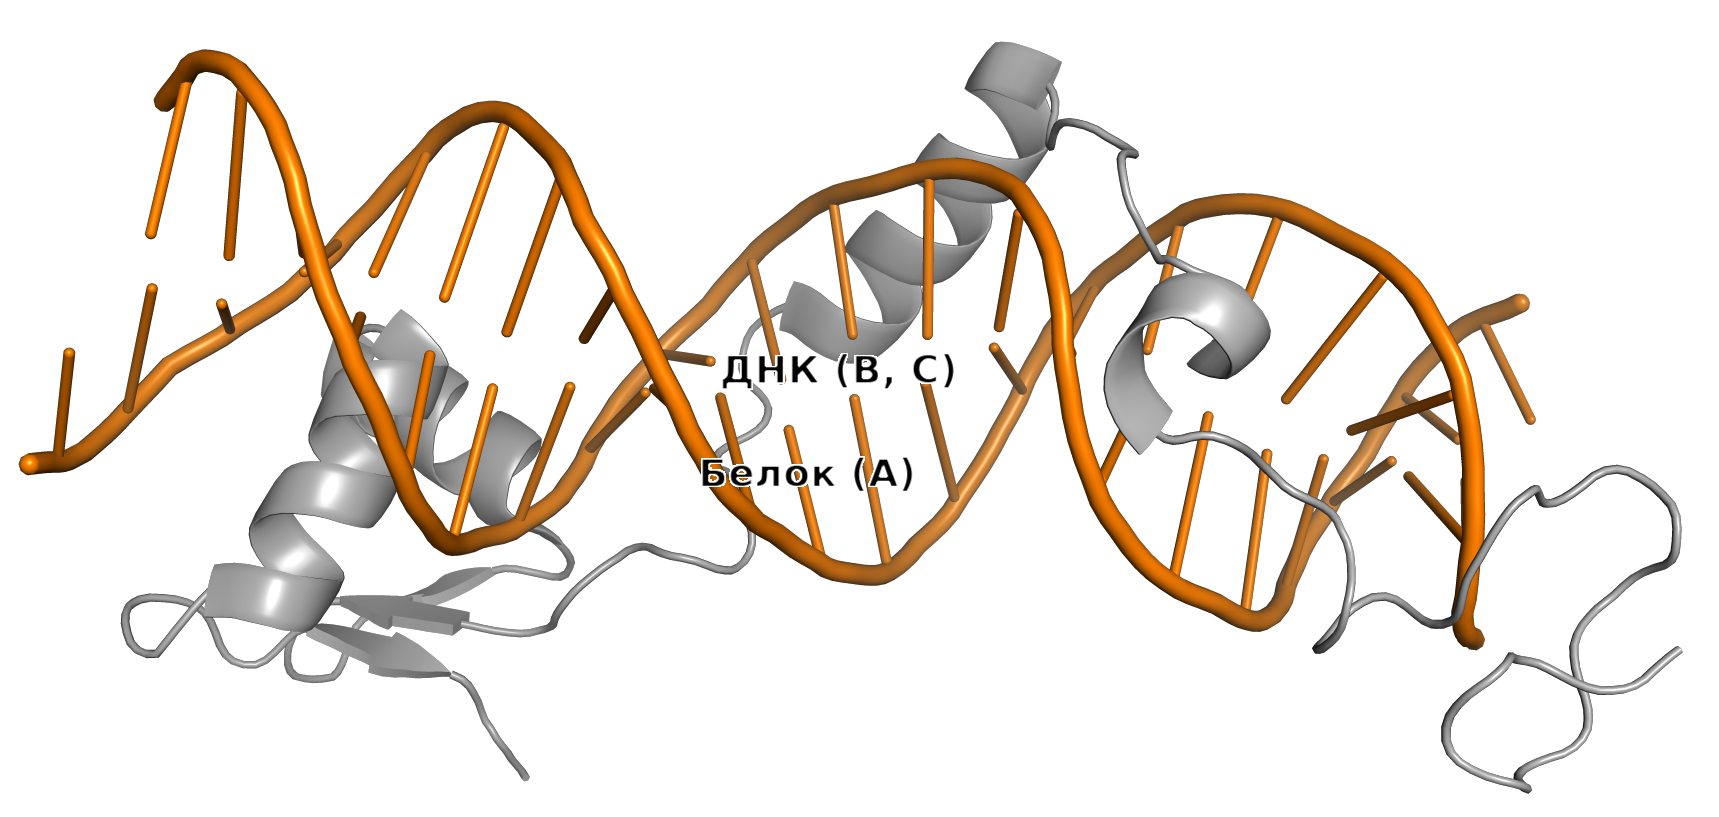
Рисунок 2. Общий вид комплекса 1I3J: белок (серый, цепь A) и ДНК (оранжевая, цепи B и C).
2.2. Контакты белка с ДНК
ДНК-белковые контакты в структуре 1I3J классифицированы по критерию из задания: полярный контакт — атомы O/N белка и ДНК на расстоянии не более 3,5 Å; неполярный — атомы C/P/S на расстоянии не более 4,5 Å. Атомы ДНК разбиты на четыре категории: 2'-дезоксирибоза, фосфатная группа, основания со стороны большой бороздки и основания со стороны малой бороздки. Результаты представлены в таблице 2.
Таблица 2. Контакты разного типа в комплексе 1I3J
| Контакты атомов белка с | Полярные | Неполярные | Всего |
|---|---|---|---|
| остатками 2'-дезоксирибозы | 10 | 136 | 146 |
| остатками фосфорной кислоты | 33 | 27 | 60 |
| остатками азотистых оснований со стороны большой бороздки | 0 | 22 | 22 |
| остатками азотистых оснований со стороны малой бороздки | 15 | 8 | 23 |
Большая часть контактов приходится на остов ДНК (дезоксирибоза + фосфат — более двух третей), в основном неполярные. В большой бороздке полярных контактов нет вообще, а в малой бороздке они составляют почти две трети — белок связывается с ДНК преимущественно через остов и малую бороздку.
Скрипт подсчёта контактов.
2.3. Схема контактов (NUCPLOT)
Схема ДНК-белковых контактов получена программой nucplot, с предварительным переводом в устаревшее именование остатков ДНК (remediator --old).
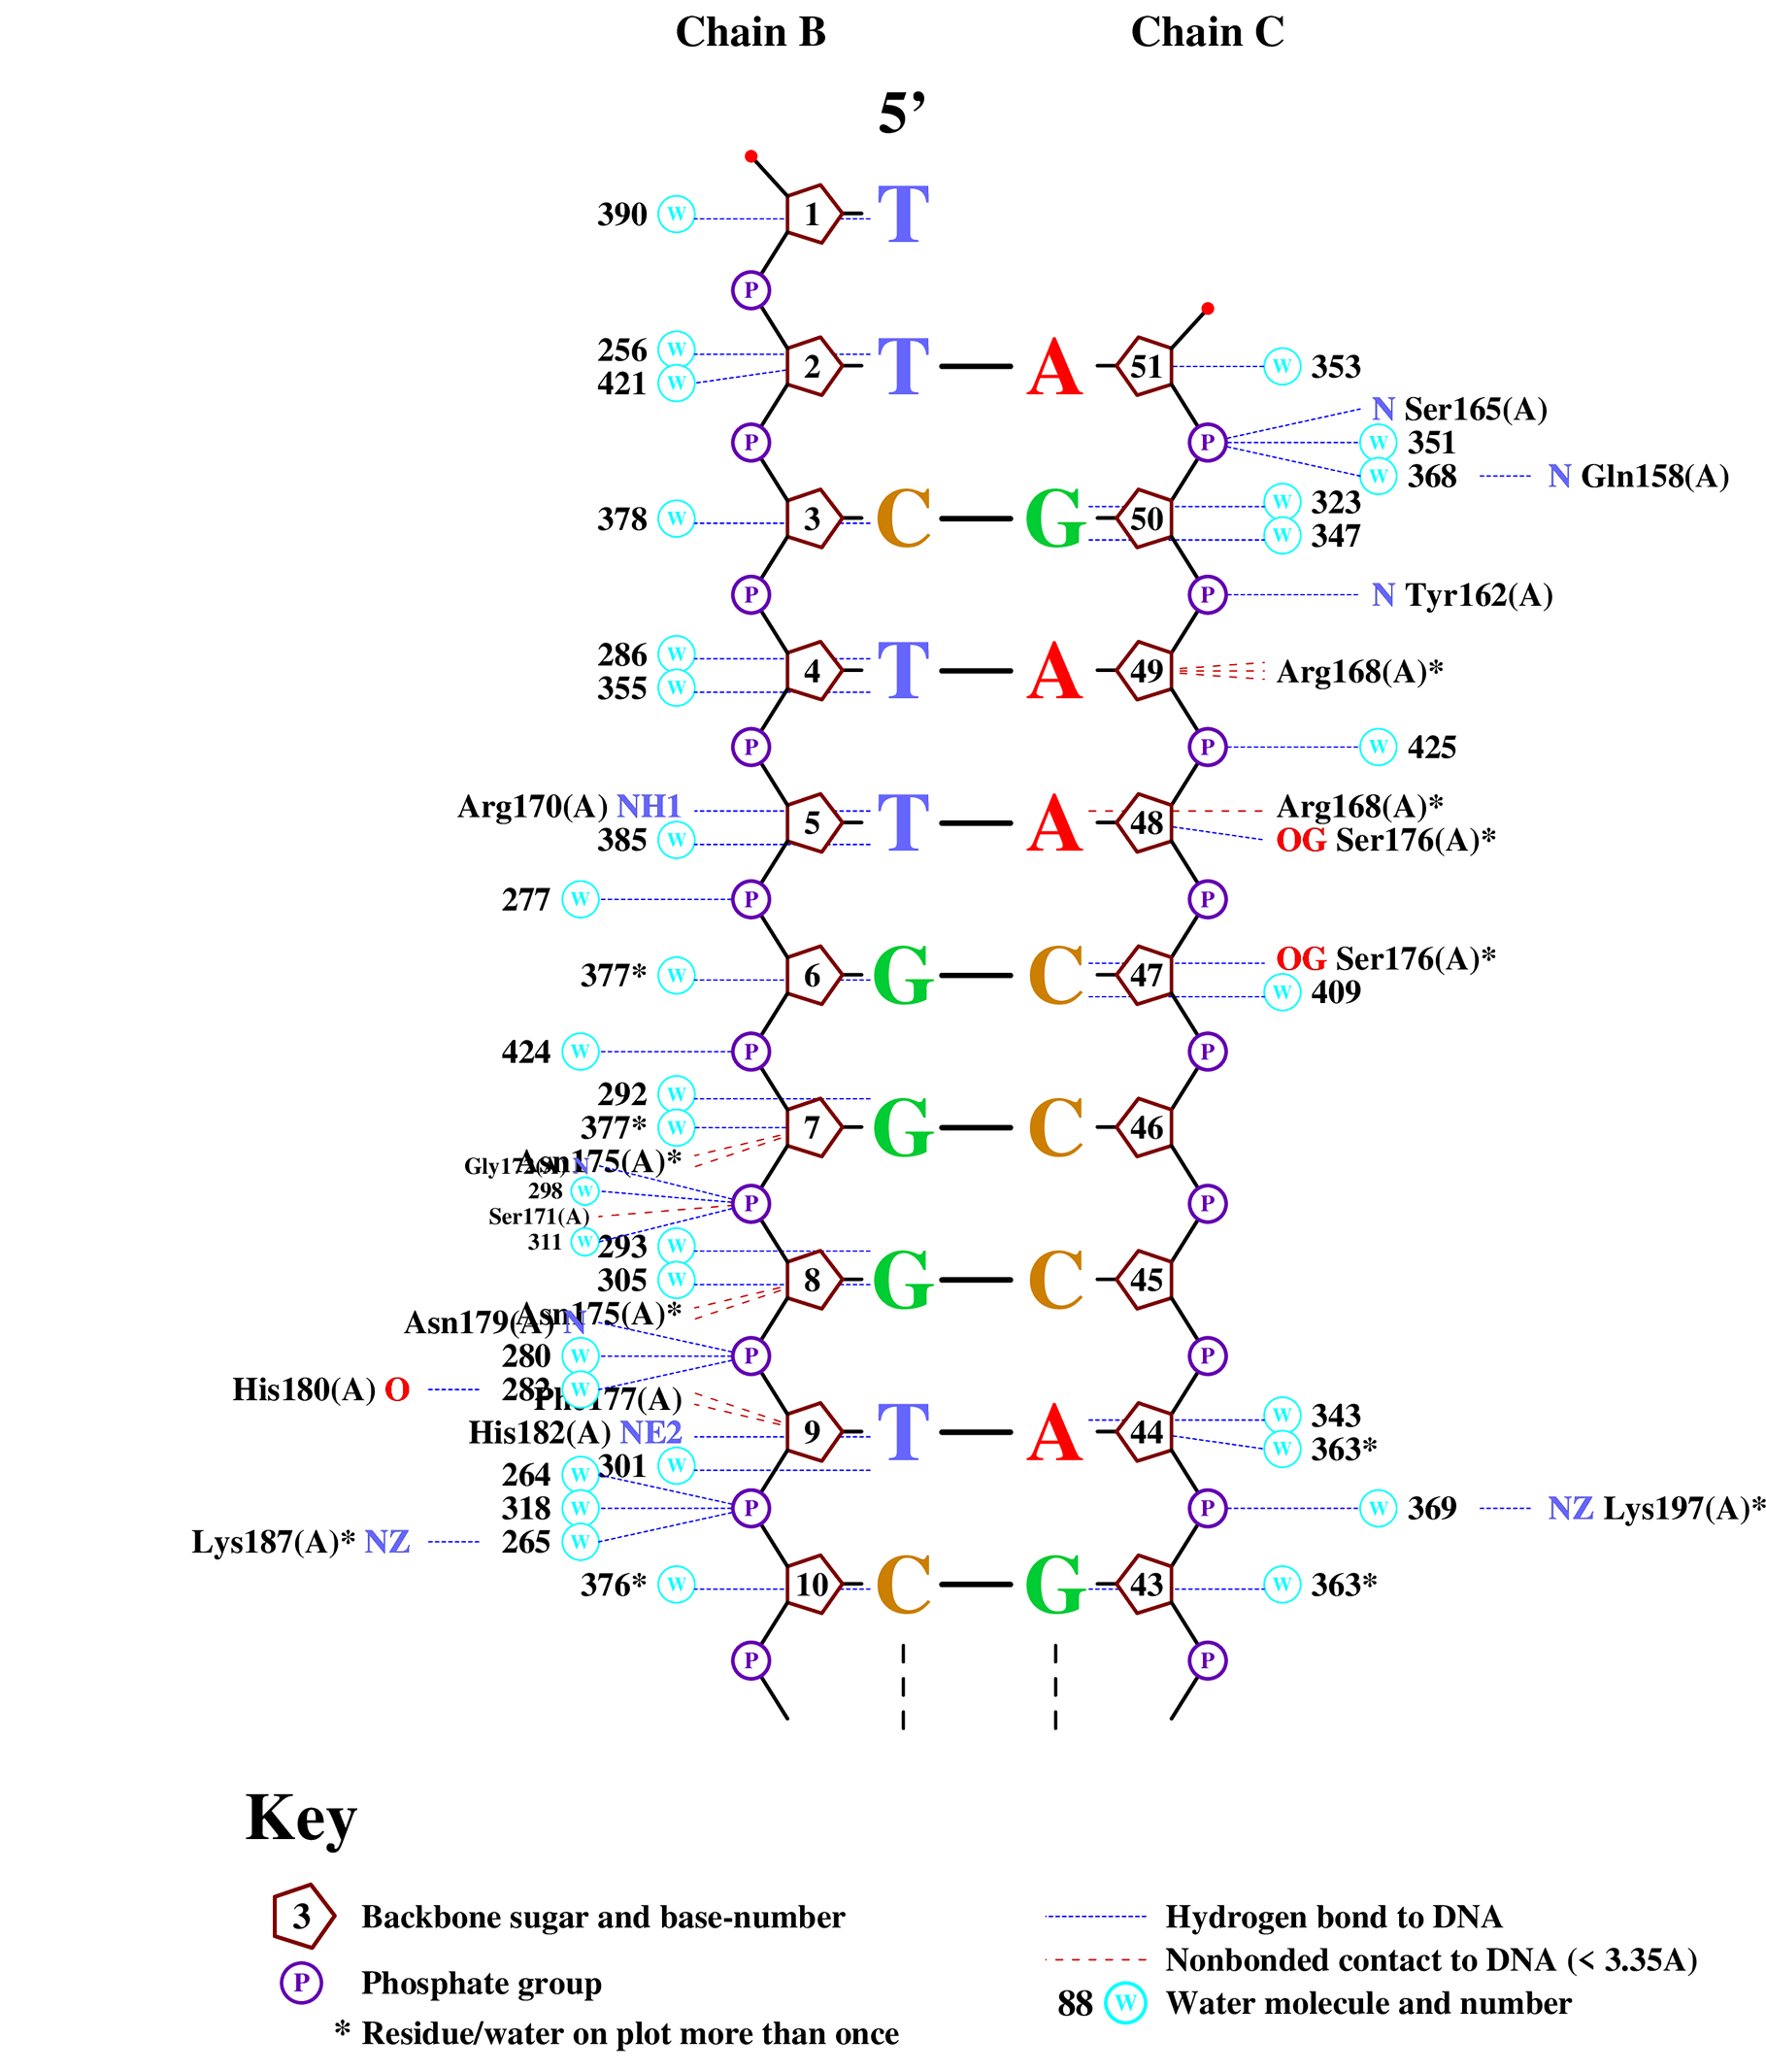
Рисунок 3а. Nucplot, стр. 1.
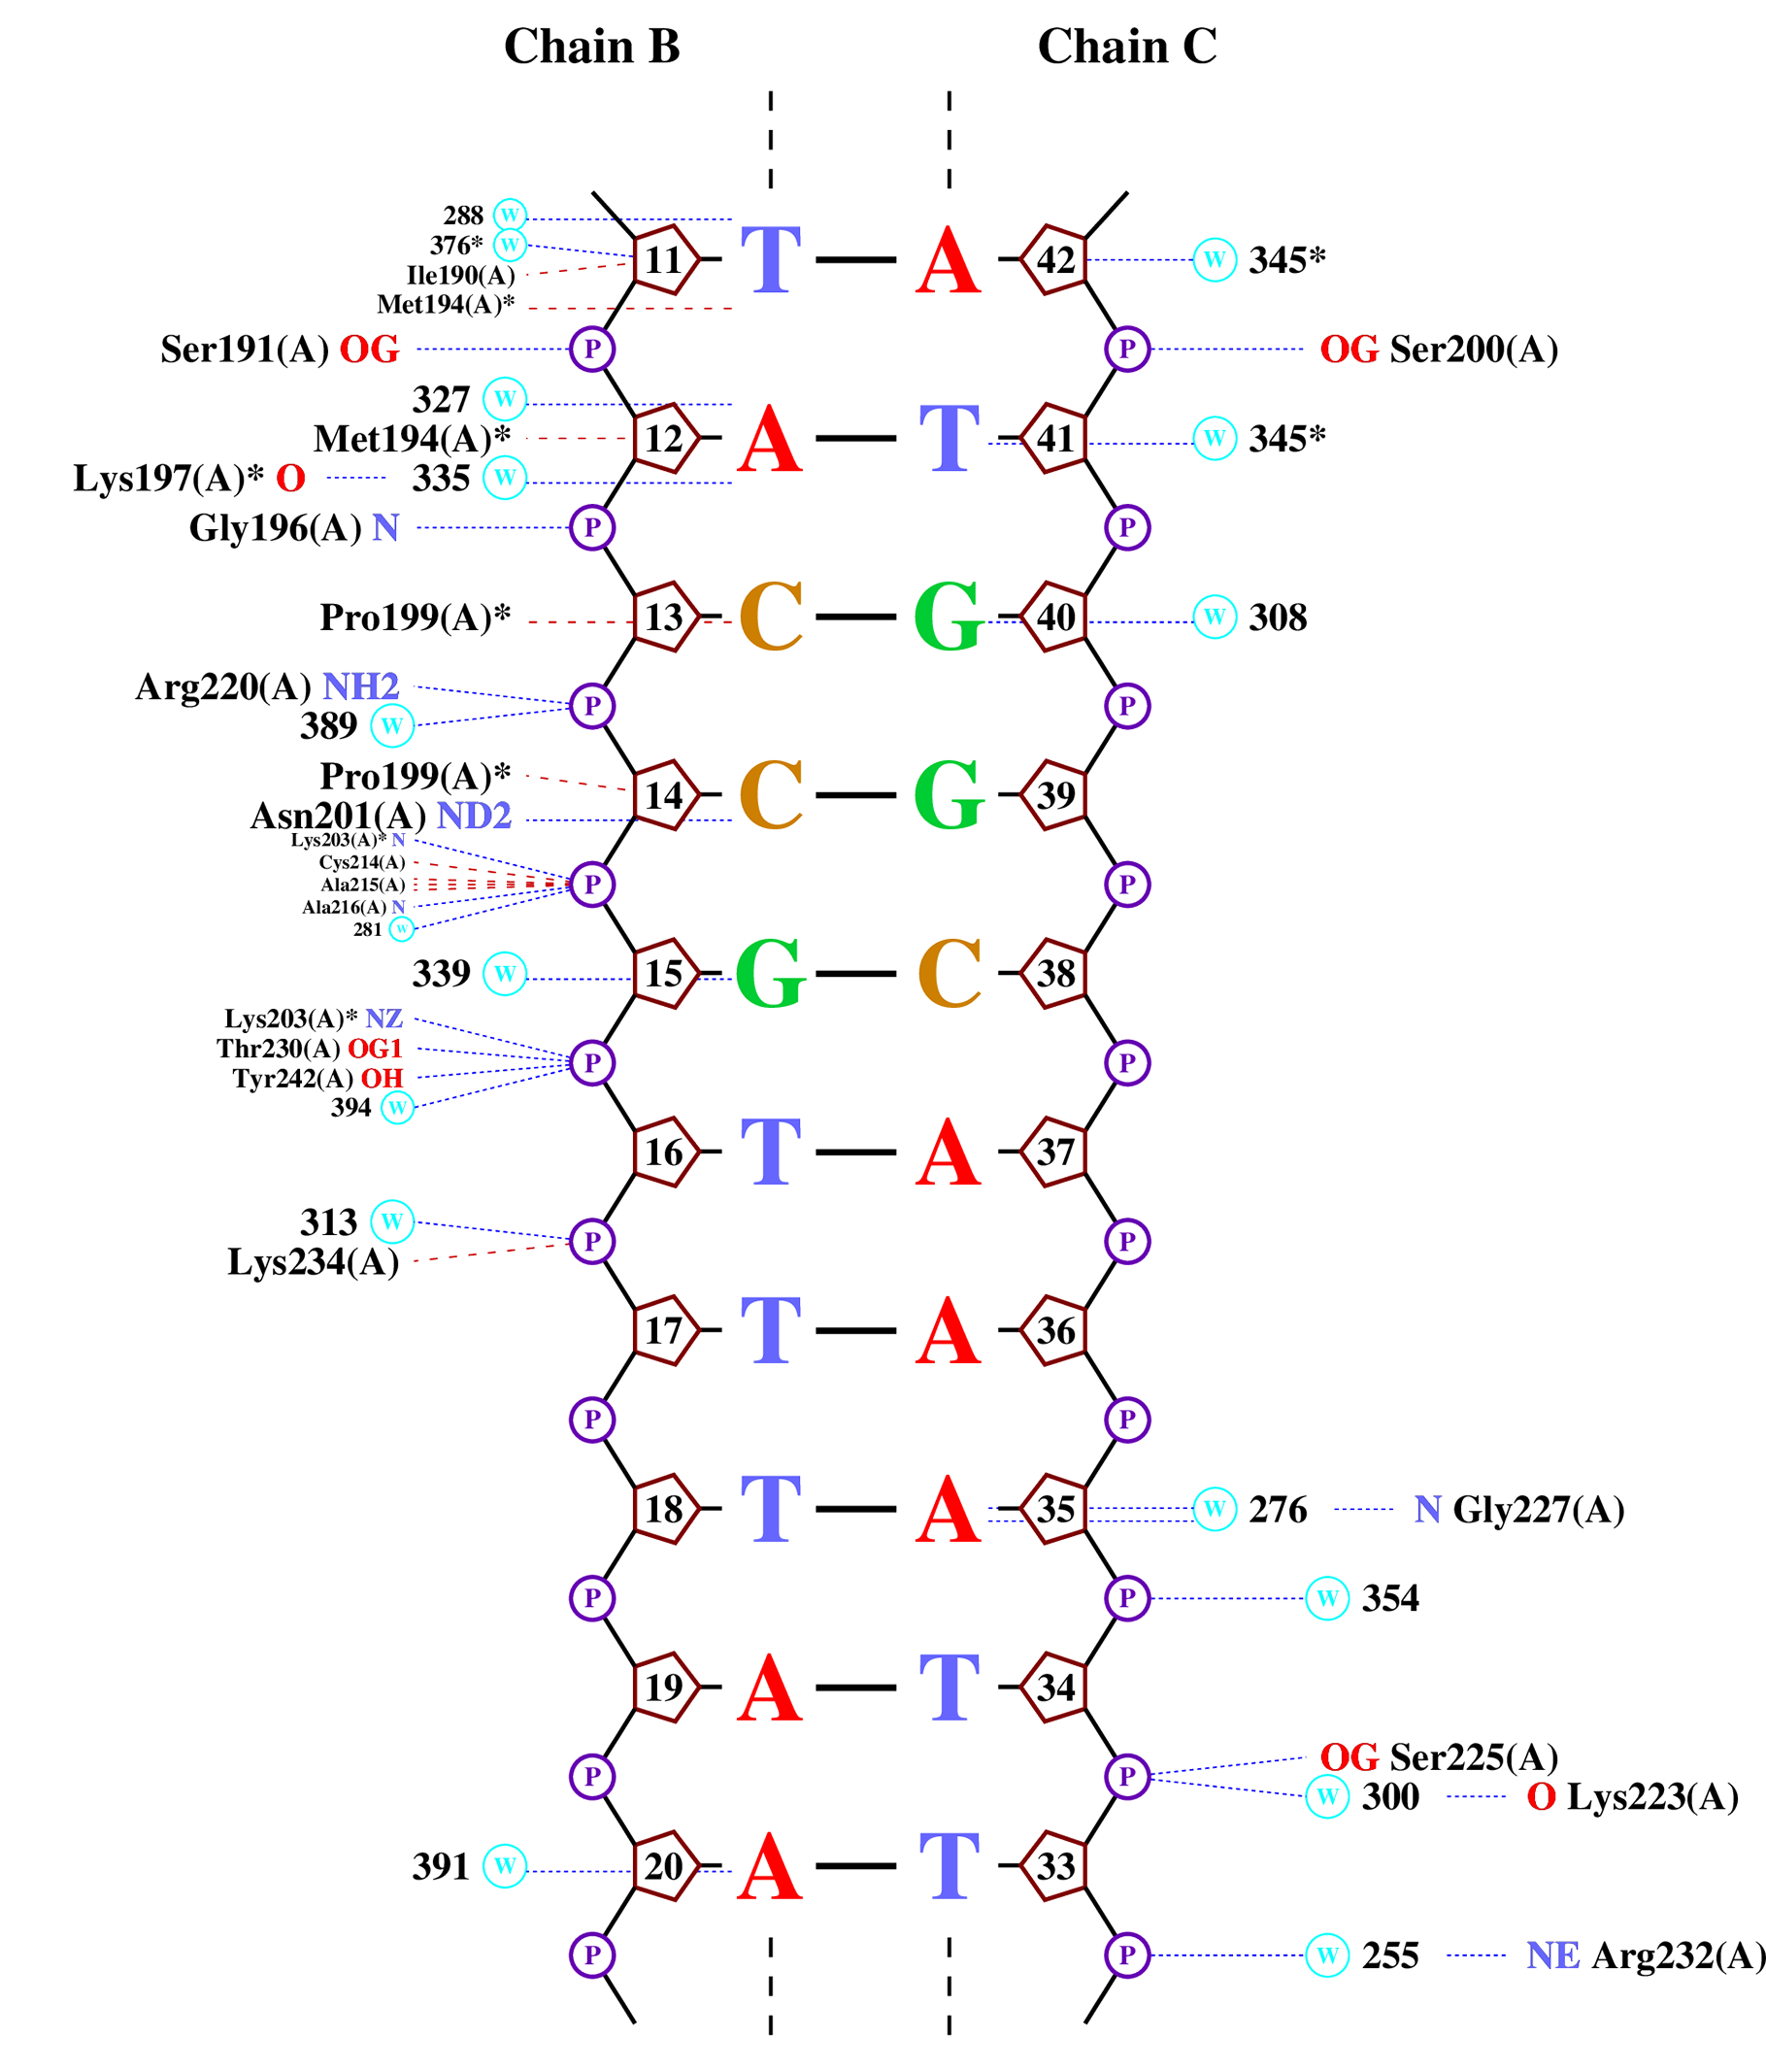
Рисунок 3б. Nucplot, стр. 2.
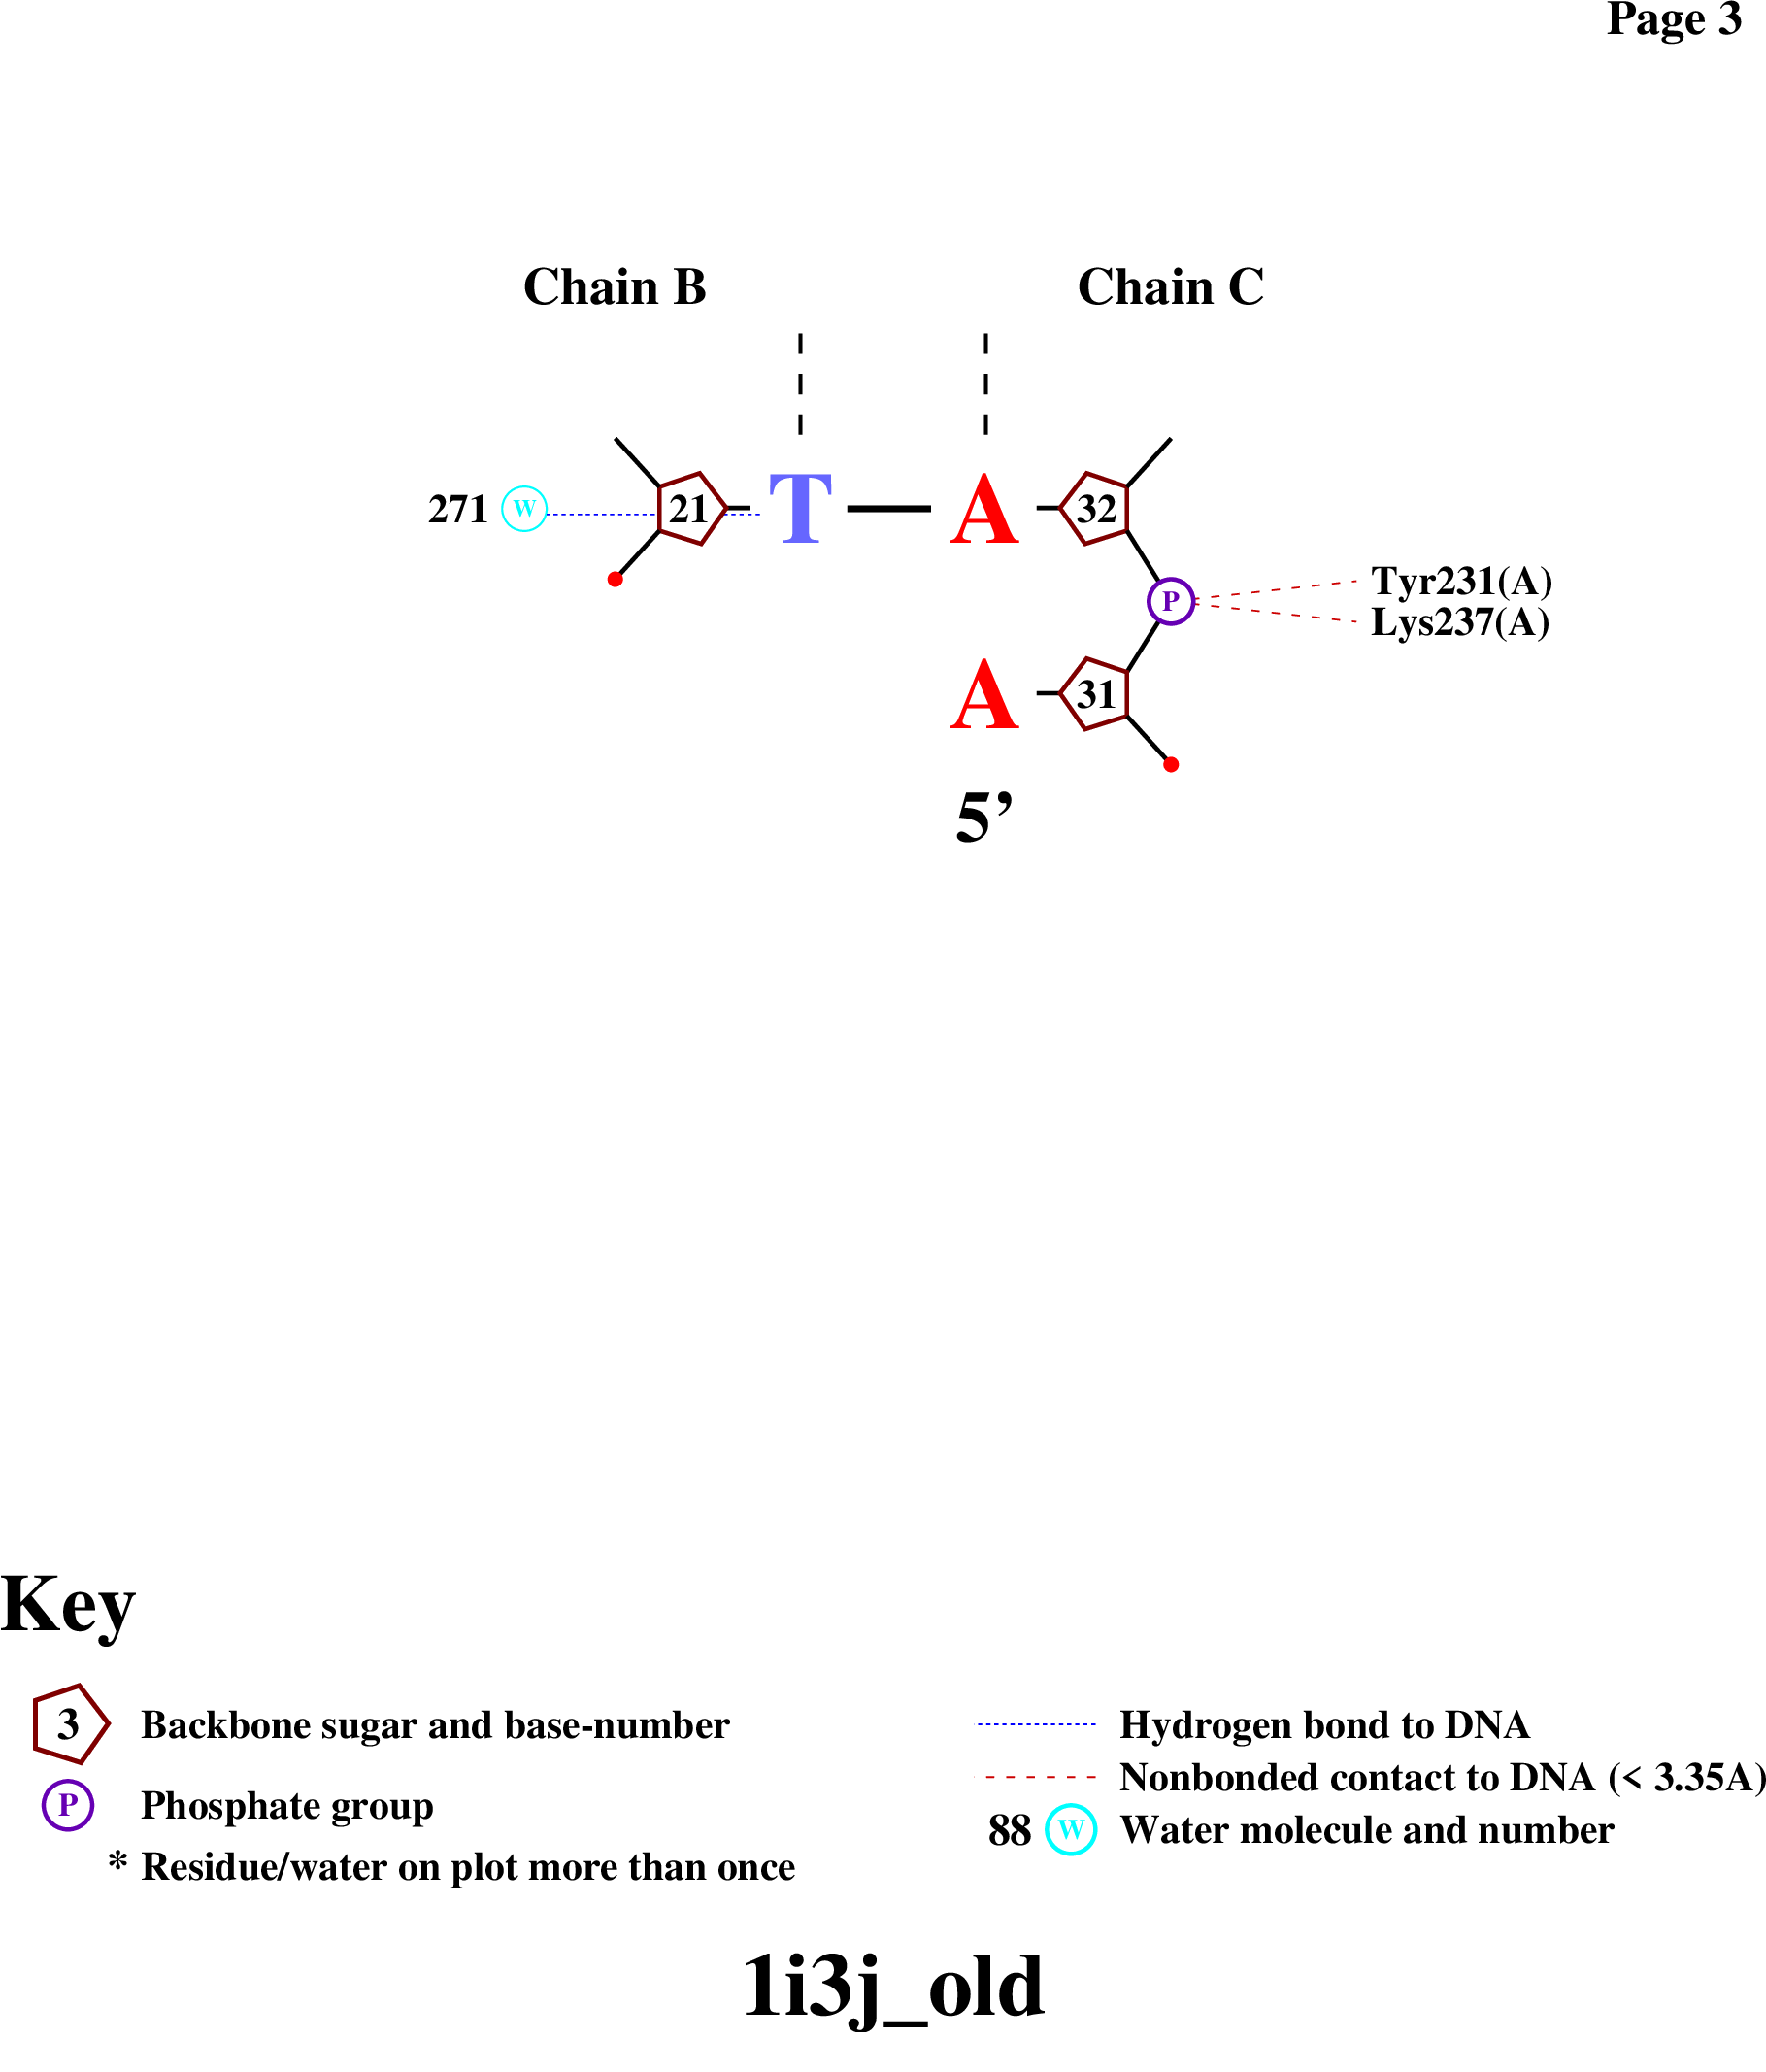
Рисунок 3в. Nucplot, стр. 3.
2.4. Ключевые взаимодействующие остатки
Наибольшее число контактов с ДНК (27, при отсечке 4 Å) — у аргинина в позиции 170 цепи белка (Arg170(A)). Он контактирует с остовом ДНК цепи B в районе G6–G7, а не с основаниями.

Рисунок 4. Arg170(A) и его контакты с остовом ДНК (G6–G7, цепь B).
Фенилаланин в позиции 177 цепи белка (Phe177(A)) образует 24 контакта сразу с двумя соседними основаниями DC46 и DC47 цепи C. Это не водородные связи, а стэкинг ароматического кольца с основаниями.
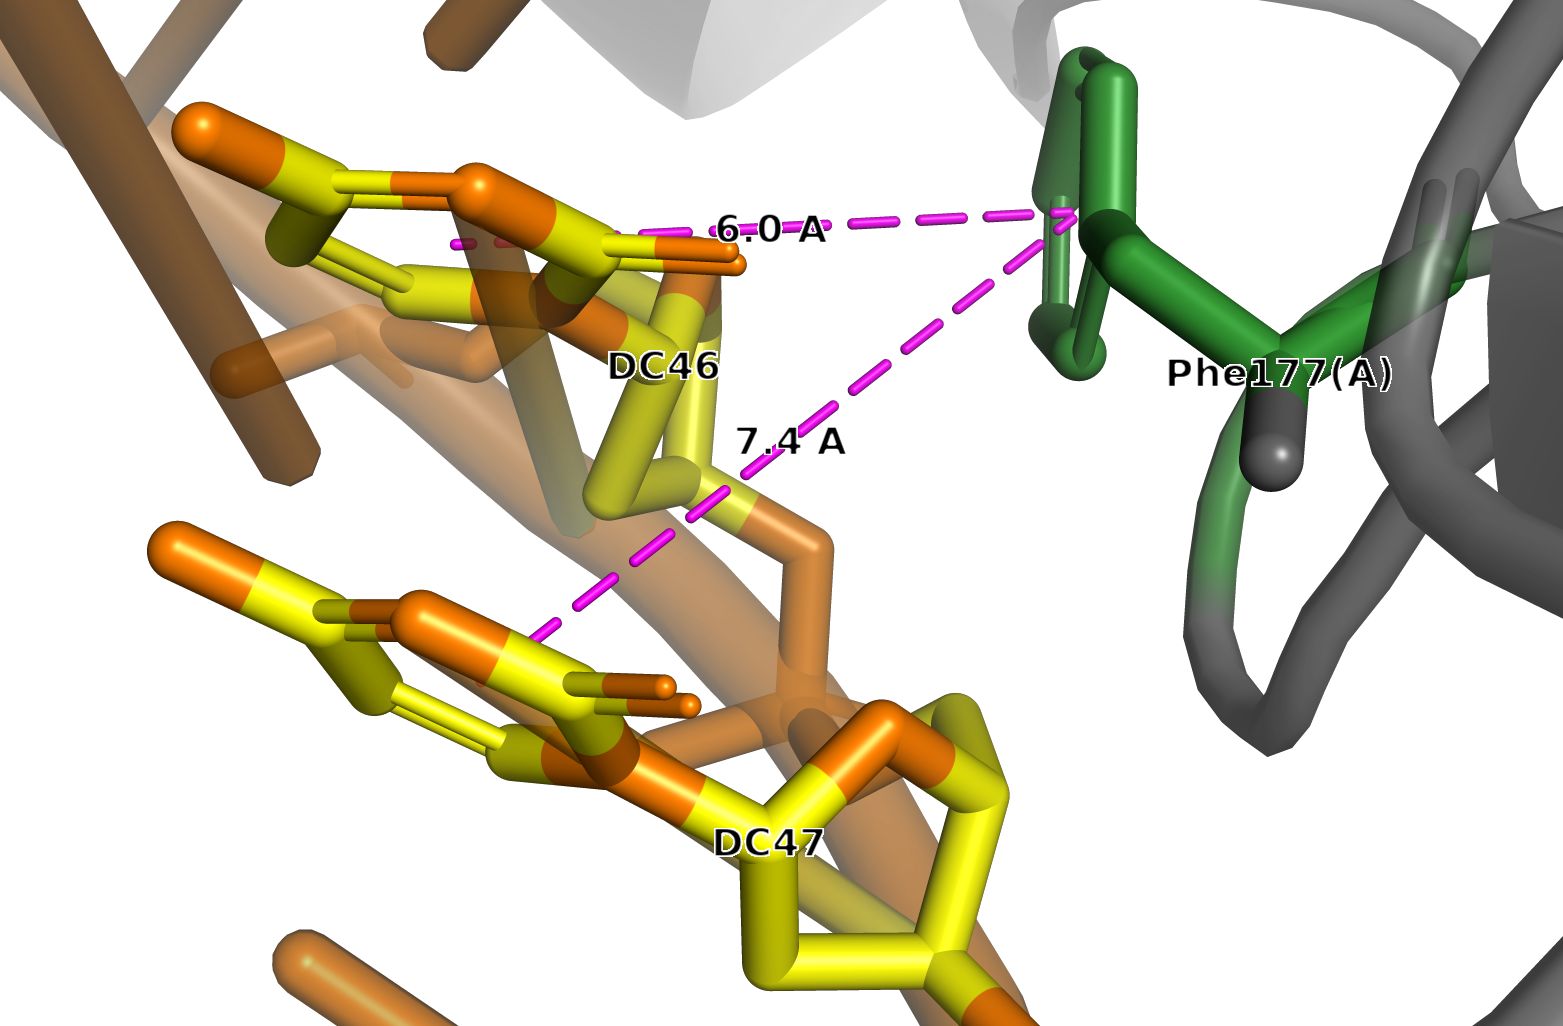
Рисунок 5. Phe177(A) и его контакты сразу с двумя основаниями DC46 и DC47 (цепь C).