Практикум 1: электронная плотность
Задание 1
Структуры - 2pwa и 1ptk. Что сразу бросается в глаза:
- разные лиганды
- разное число молекул воды
Но вот по качеству пока не видно никакой разницы.
Изобразим электронные плотности этих структур (рис. 1-2).
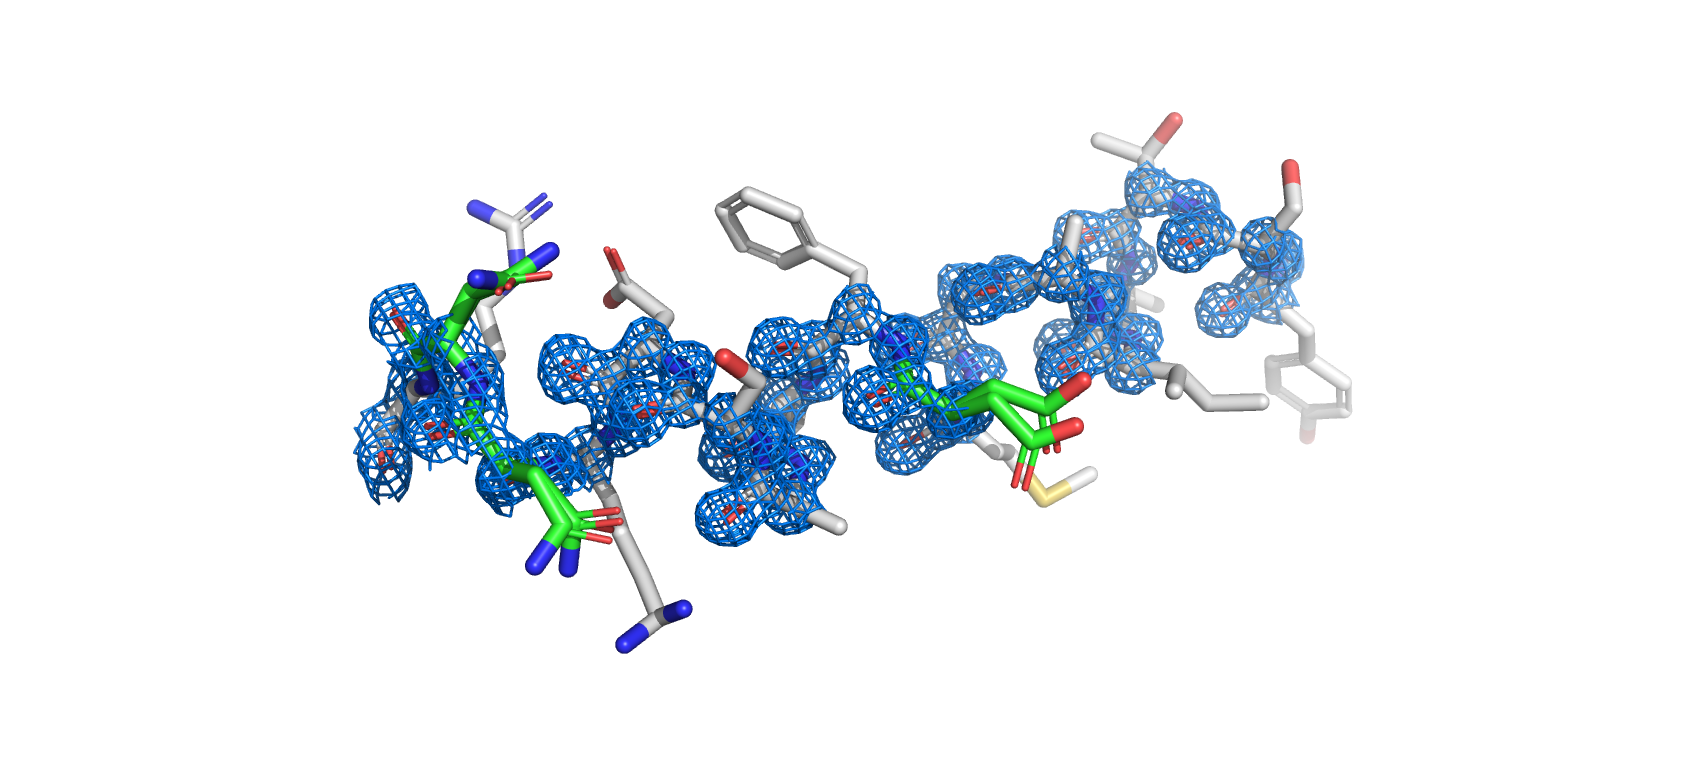
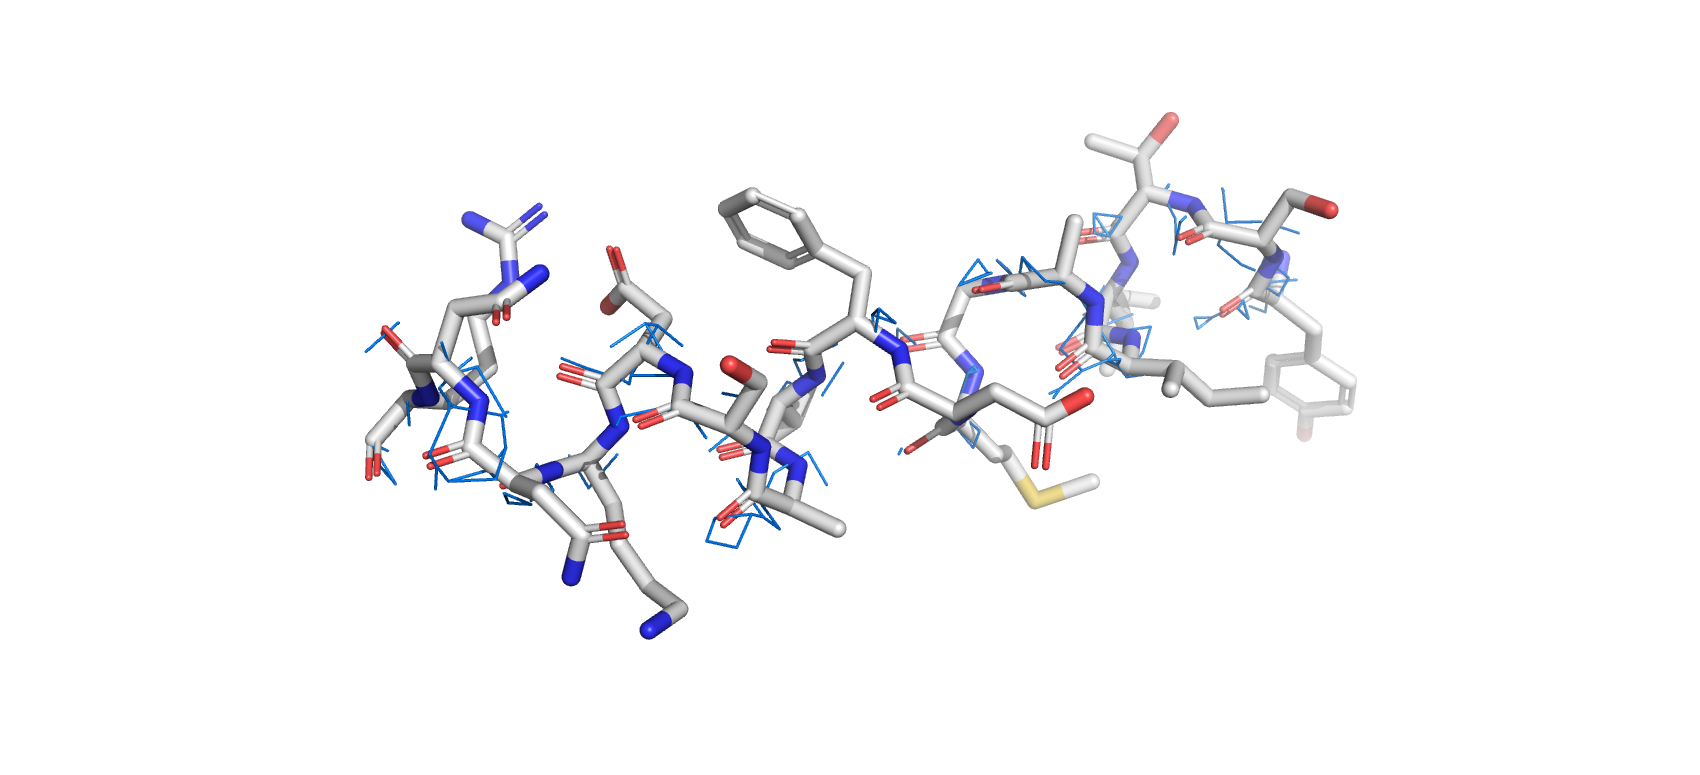
Различия колоссальны - электронная плотность не совпадает с заявленной структурой 1ptk; структура же 2pwa очень точно совпадает со своей электронной плотностью. Кроме того, у электронной плотности для структуры 2pwa зафиксированы альт-локи некоторых аминокислотных остатков - на изображении отмечены зеленым остатки аспарагинов и аспарагиновой кислоты с двумя вариантами поворота радикала.
Это говорит о более высоком разрешении электронной плотности в случае 2pwa. Качество интерпретации электронной плотности у 1ptk оставляет желать лучшего - сама по себе построенная электронная плотность имеет низкое качество. Для структуры 1ptk пришлось поменять параметры команды isomesh, чтобы хоть какую-нибудь электронную плотность увидеть вокруг выбранной альфа-спирали. Структура же 2pwa просто совпадает со своей экспериментальной эл. плотностью, и она сама по себе выглядит адекватно - они шарообразные и полные (описывают все атомы структуры), в то время как эл. плотность 1ptk выглядит фрагментарно и описывает далеко не все атомы структуры.
Что и следовало ожидать - на сайте PDB у структуры 2PWA гораздо выше разрешение, чем у 1PTK:
- 2pwa - очень высокое разрешение: 0.83 А!
- 1ptk - разрешение гораздо ниже 2pwa: 2.40 A.
Задание 2
Струкутра - 5zkc (рис. 3-5). Параметр carve = 2. Левая часть белка находится на заметном расстоянии от правой. Это регион низкой электронной плотности, который слабо отличен от шума (фоновой электронной плотности). Также низкую электронную плотность имеют некоторые концы альфа-петель правой части белка.


Эти регионы с низкой электронной плотностью потенциально имеют меньше возможностей для взаимодействия с другими аминокислотными остатками той же молекулы белка, и как следствие они гораздо подвижнее более стабильных в пространстве электрон-плотных регионов, которые преимущественно расположены в серединах альфа-петель более крупной правой части данного белка. Эти регионы низкой плотности - концы альфа-спиралей и левая часть белка, которая, вероятно, является отдельным доменом.
Задание 3
Даны 6QJL, Glu395 (рис. 6-7).

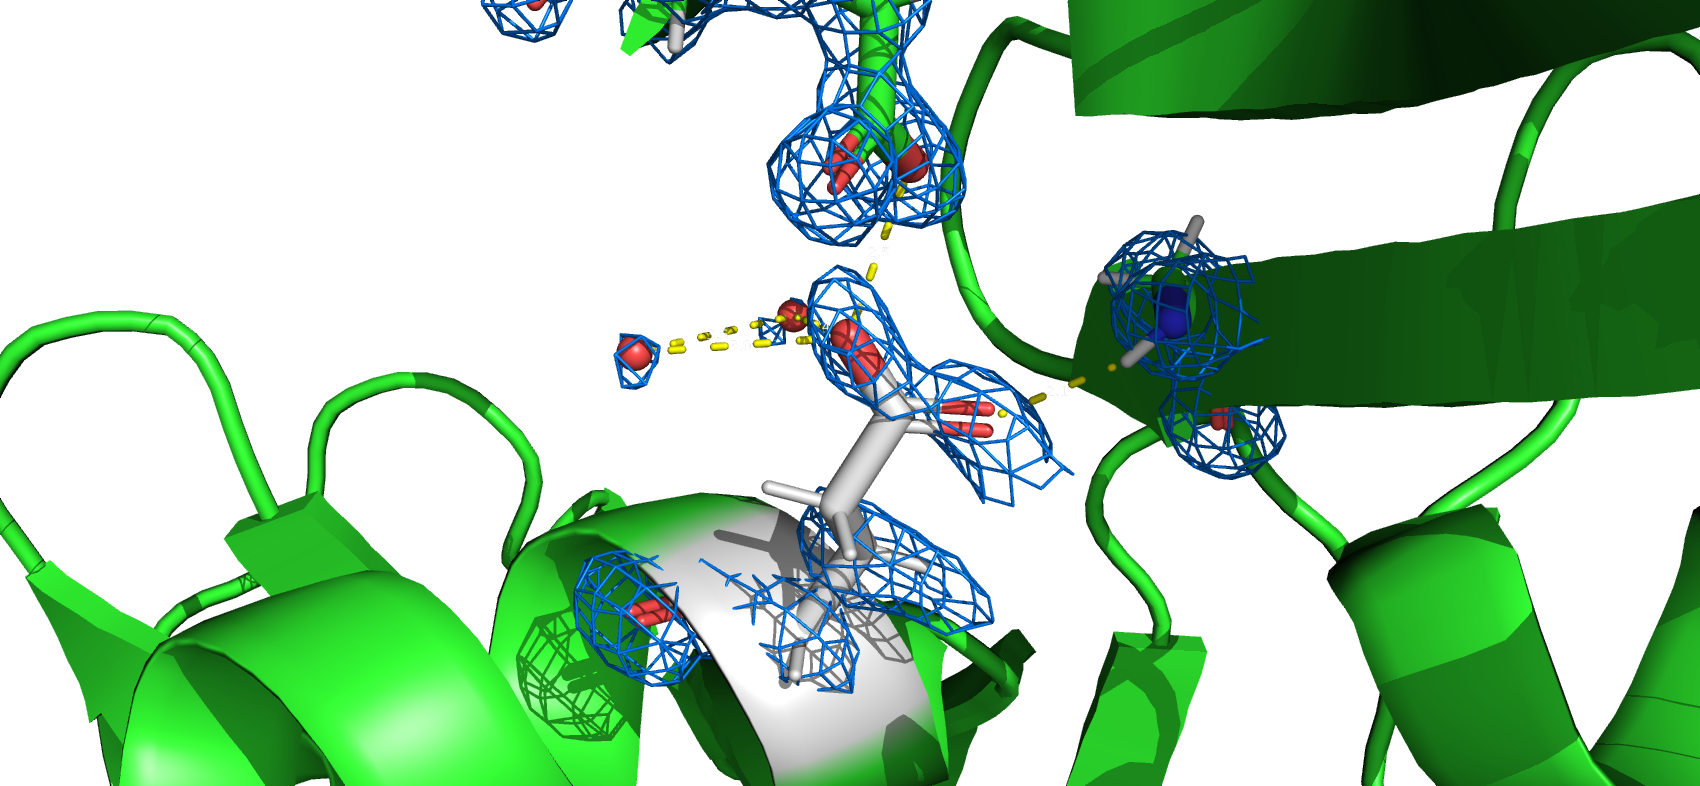
Альт-лок А кажется стабильнее - глутамат в ней обладает водородной связью с протоном пептидной связи.
Альт-лок B кажется сомнительным - там глутамат находится близко от другого глутамата. Кислород в норме обладает свободными электронными парами + глутаматы могут быть депротонированы и как следствие - отрицательно заряжены - такое соседство не кажется энергетически выгодным - одноименные заряды отталкиваются, свободные электронные пары толкаются друг с другом - выглядит маловероятно.
Данные по населённости подтверждают высказанные ранее предположения:
> iterate resi 395 and chain B, print(resn, resi, name, alt, q)
GLU 395 N A 0.6499999761581421
GLU 395 N B 0.3499999940395355
GLU 395 CA A 0.6499999761581421
GLU 395 CA B 0.3499999940395355
...
GLU 395 HG3 A 0.6499999761581421
GLU 395 HG3 B 0.3499999940395355
Как и предполагалось, альт-лок А встретился чаще (65%), чем альт-лок B (35%).
Задание 4
Величина B-фактора показывает, на сколько "размыто" положение данного атома. Покрасим 6QJL по B-фактору (рис. 8-9).
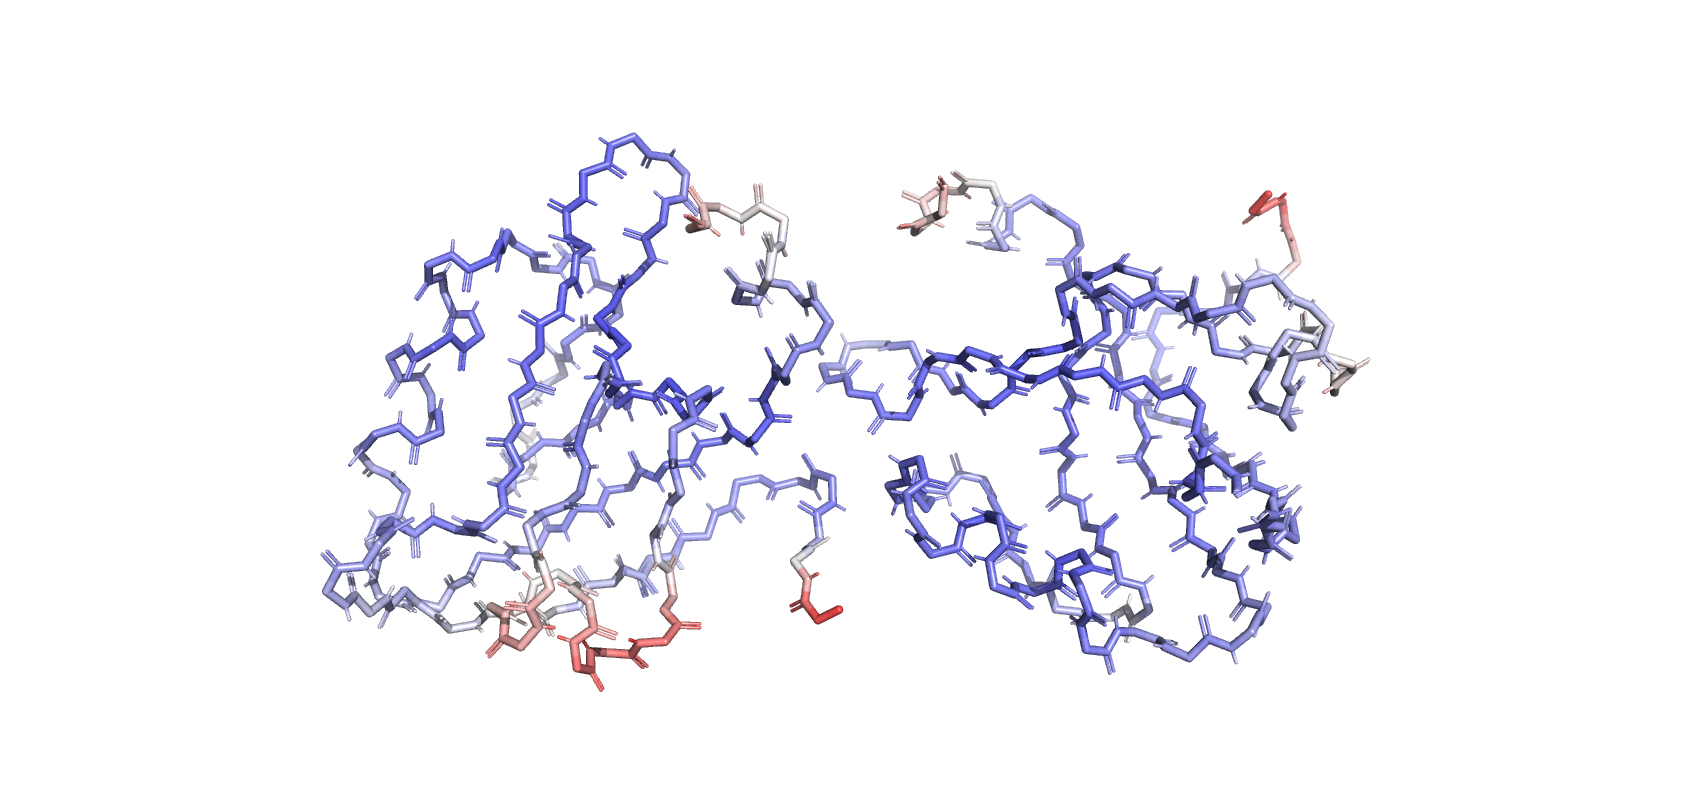

Как видно на картинках, в центре глобул B-фактор низкий, а высокий B-фактор встречается лишь на периферии этих глобул, т. ч. связь положения атома в белке с его B-фактором есть.
Рассмотрим подробнее аспартат 306 цепи B, который имеет высокий B-фактор (рис. 10-12).


Он находится на окраине глобулы и имеет высокий B-фактор - вероятно, этот аминокислотный остаток очень подвижен.
- Рисунок 10: уровень подрезки = 1. Почти для всех атомов изображена электронная плотность. Есть области эл. плотности, которые намекают на подвижность данной аминокислоты.
- Рисунок 11: уровень подрезки = 2. Электронная плотность изображена лишь у некоторых атомов остова.
- Рисунок 12: уровень подрезки = 3. Электронная плотность не наблюдается для данной аминокислоты, и она изображена только для ближайших аминокислот с разумным B-фактором (carve пришлось выкрутить с 2 до 5, чтобы увидеть хоть какую-нибудь эл. плотность поблизости).
Вывод: электронная плотность остатка с низким B-фактором очень мала и снижается от атомов остова (наиболее стабильные в остатке) к атомам радикала (наиболее подвижные в остатке).