Практикум №3: Вторичная структура тРНК и ДНК-белковые контакты
Задание 1. Предсказание вторичной структуры заданной тРНК
Для исследования была выбрана фенилаланиновая тРНК дрожжей, экспериментальная структура которой представлена в PDB под идентификатором 1EHZ. В ходе работы проводилось сравнение экспериментальной вторичной структуры тРНК с результатами предсказания программами einverted из пакета EMBOSS и ViennaRNA.
1.1. Предсказание с помощью einverted
Программа einverted использовалась для поиска инвертированных повторов в последовательности тРНК. Параметры:
- Gap penalty: 12
- Minimum score threshold: 10
- Match score: 3
- Mismatch score: −3
Программа обнаружила два комплементарных участка: 22–31 / 39–48 (антикодоновый стебель) и 49–53 / 61–65 (T-стебель). Полная вторичная структура тРНК с помощью данного метода восстановлена не была.
1.2. Предсказание с помощью ViennaRNA
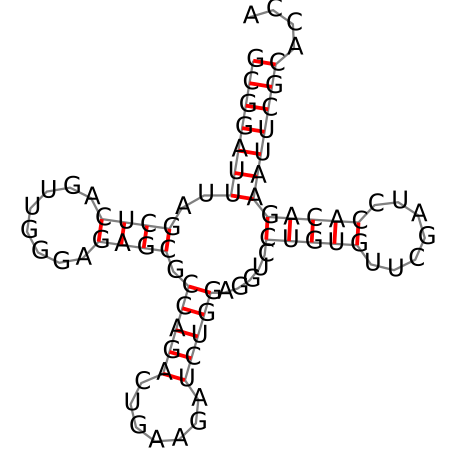
Для предсказания вторичной структуры также использовалась библиотека ViennaRNA, реализующая алгоритм поиска структуры с минимальной свободной энергией. Полученная минимальная свободная энергия составила −22,40 ккал/моль. Предсказанная структура содержала 19 пар оснований и включала основные стебли тРНК.
1.3. Сравнение результатов
Для сравнения использовались экспериментальная структура 1EHZ, результаты программы einverted и предсказание ViennaRNA.
| Стебель | find_pair (1EHZ) | einverted | ViennaRNA |
|---|---|---|---|
| Акцепторный | 1–7 / 66–72 | — | 1–7 / 66–72 |
| D-стебель | 10–13 / 22–25 | — | 10–13 / 22–25 |
| Антикодоновый | 26–30 / 40–44 | 22–31 / 39–48 | 27–31 / 39–43 |
| T-стебель | 49–53 / 61–65 | 49–53 / 61–65 | 49–53 / 61–65 |
| Общее число канонических пар | 22 | 13 | 19 |
ViennaRNA воспроизвела расположение акцепторного, D- и T-стеблей. В антикодоновом стебле наблюдалось смещение предсказанных пар оснований. Программа einverted обнаружила отдельные инвертированные повторы, однако её результаты не позволили полностью восстановить клеверную структуру тРНК.
Задание 2. Поиск ДНК-белковых контактов в заданной структуре
Для анализа был выбран комплекс TBP (TATA-binding protein) с ДНК — PDB-идентификатор 1CDW (разрешение 1.9 Å).
Упражнение 1. Визуализация в PyMOL
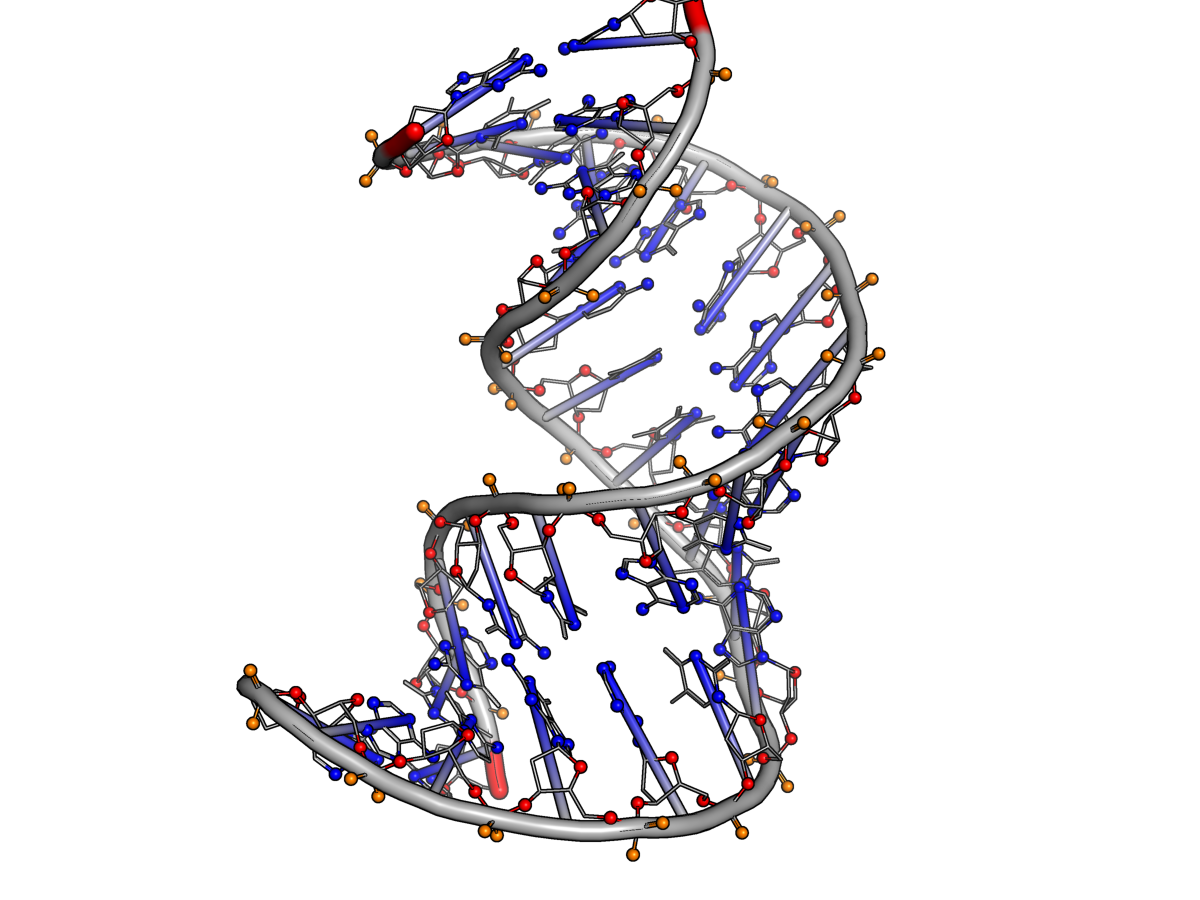
С помощью PyMOL была проведена визуализация комплекса ДНК с белком. Были выделены три набора атомов:
- Set1 — атомы кислорода дезоксирибозы
- Set2 — атомы кислорода фосфатных групп
- Set3 — атомы азота азотистых оснований
Был создан скрипт PyMOL, позволяющий последовательно визуализировать весь комплекс, только ДНК и выделенные наборы атомов.
Упражнение 2. Расчёт ДНК-белковых контактов
На основе атомных координат комплекса был проведён расчёт контактов между ДНК и белком. Использовались следующие критерии:
- Полярные контакты: расстояние между атомами O/N не более 3,5 Å
- Неполярные контакты: расстояние между атомами C/P/S не более 4,5 Å
| Область ДНК | Полярные | Неполярные | Всего |
|---|---|---|---|
| Дезоксирибоза | 4 | 145 | 149 |
| Фосфатные группы | 19 | 11 | 30 |
| Азотистые основания | 6 | 40 | 46 |
| Итого | 29 | 196 | 225 |
В исследованной структуре было обнаружено 225 контактов: 29 полярных и 196 неполярных. Наибольшее количество контактов обнаружено с остатками дезоксирибозы (149), что указывает на преимущественное взаимодействие белка с сахаро-фосфатным остовом. Однако значительная часть контактов приходится и на азотистые основания (46), что связано с особенностью TBP — его ароматические аминокислоты (PHE284, PHE301, PHE210) вставляются в малую бороздку ДНК и взаимодействуют с основаниями гидрофобно.
Упражнение 3. Анализ с помощью Nucplot
С помощью программы Nucplot была получена схема ДНК-белковых взаимодействий в комплексе 1CDW. Результат сохранён в файлах 1CDW.hb2 (водородные связи) и 1CDW.nb2 (нековалентные контакты).
Упражнение 4. Анализ отдельных аминокислотных остатков
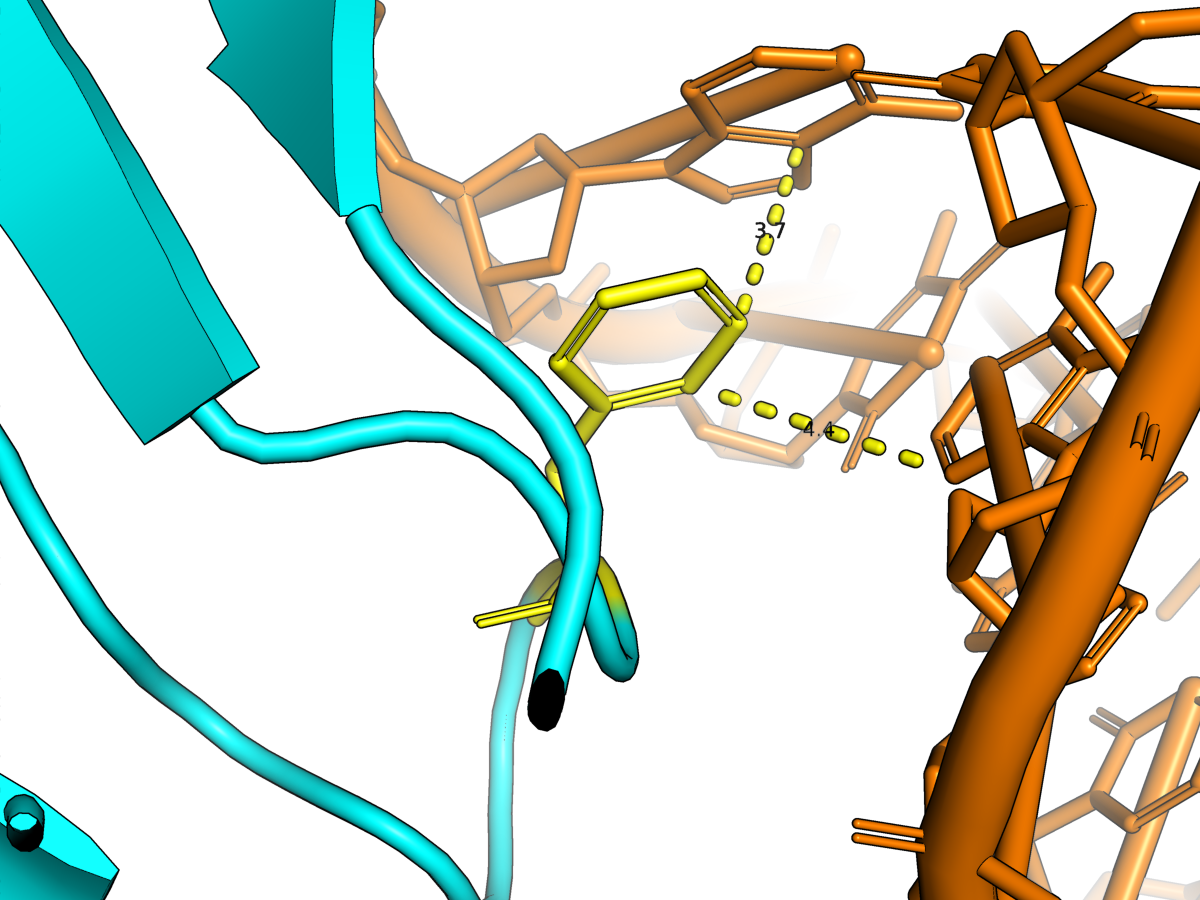
Для определения аминокислот, наиболее активно взаимодействующих с ДНК, были подсчитаны контакты каждого остатка с атомами ДНК. Наибольшее количество обнаружено у PHE284 (24 контакта), PHE301 (20) и PHE210 (19). Все они — ароматические аминокислоты, вставляющиеся в малую бороздку ДНК.
PHE284 взаимодействует с DT5, DA6 (цепь B) и DA112 (цепь C). Контакты: 3.7 Å и 4.4 Å.
PHE210 взаимодействует с DA11 и DG12 (цепь B). Контакты: 4.1 Å и 4.1 Å.
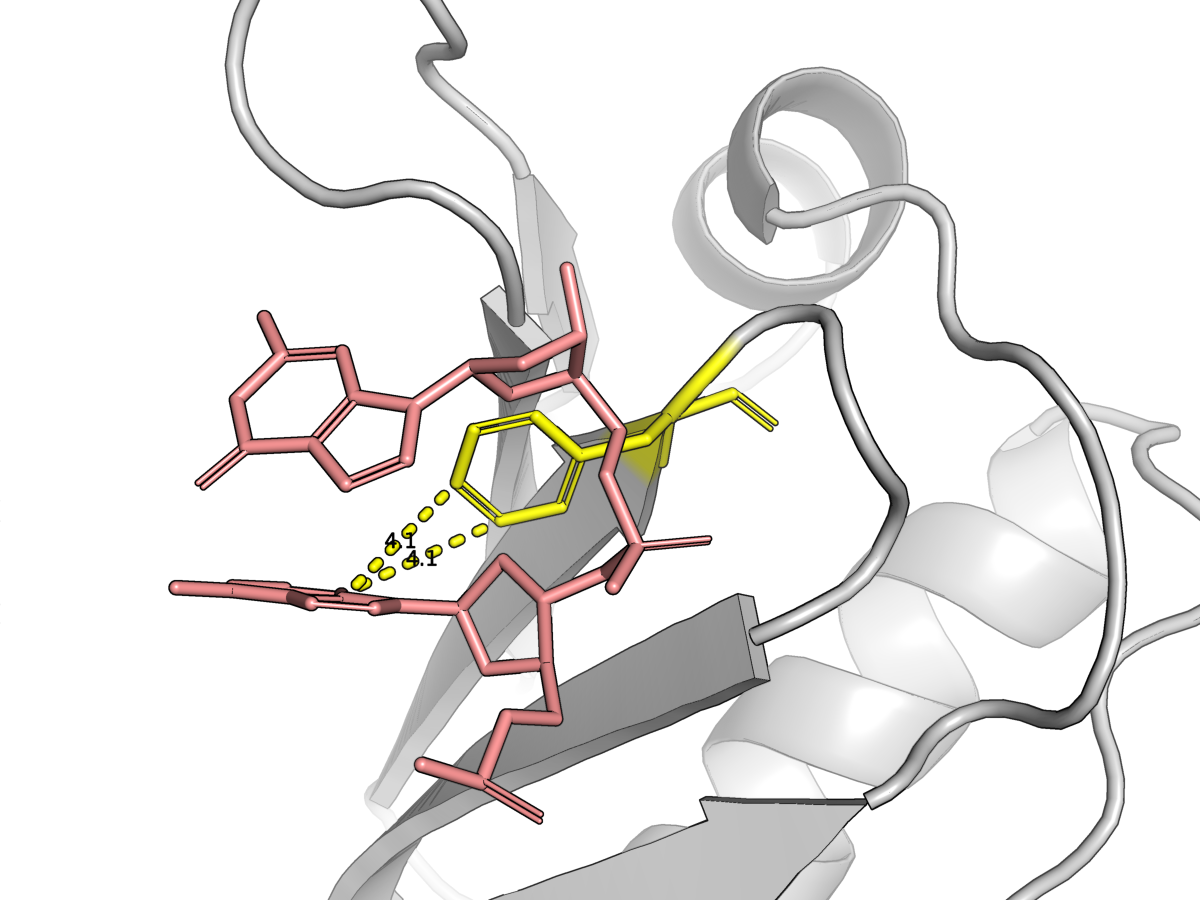
Взаимодействие ароматических аминокислот (PHE) с азотистыми основаниями через малую бороздку — ключевой механизм распознавания TATA-бокса белком TBP. Вставка фенилаланинов между основаниями приводит к сильному изгибу ДНК, что необходимо для инициации транскрипции.
Файлы для проверки: