Практикум 3. Алгоритмы филогенетической реконструкции (сиквел)
Получение выравнивания по 12S rRNA
Поиск митохондриальных геномов (12S рРНК) проводился на сайте ENA в режиме Advanced Search по типу данных Nucleotide sequences. Фильтры:
- Вид устанавливался на вкладке Taxonomy and related -> NCBI Taxonomyt = [taxonomy]
- Тип "кольцевая молекула" устанавливался на вкладке Seqenced molecule -> Topology = Circular
| Вид | Мнемоника | ENA Accession | Ссылка ENA |
|---|---|---|---|
| Allocyttus niger | ALLNG | AP004435 | https://www.ebi.ac.uk/ena/browser/view/AP004435 |
| Anguilla interioris | ANGIN | AP007241 | https://www.ebi.ac.uk/ena/browser/view/AP007241 |
| Anoplogaster cornuta | ANOCO | AP004425 (выбран на фоне других записей как референсный) | https://www.ebi.ac.uk/ena/browser/view/AP004425.1 |
| Astronotus ocellatus | ASTOC | AP009127 | https://www.ebi.ac.uk/ena/browser/view/AP009127 |
| Dactyloptena peterseni | DACPE | AP002947 | https://www.ebi.ac.uk/ena/browser/view/AP002947 |
| Danio rerio | DANRE | PV357752 (выбран из нескольких вариантов) | https://www.ebi.ac.uk/ena/browser/view/PV357752 |
| Indostomus paradoxus | INDPA | AP004438 | https://www.ebi.ac.uk/ena/browser/view/AP004438 |
| Pethia conchonius | PETCC | AB863607 | https://www.ebi.ac.uk/ena/browser/view/AB863607 |
| Poeciliopsis occidentalis | POEOC | MK860198 | https://www.ebi.ac.uk/ena/browser/view/MK860198 |
| Tetraodon nigroviridis | TETNG | AP006046 | https://www.ebi.ac.uk/ena/browser/view/AP006046 |
Далее все файлы были собраны в единый файл all_12S_rRNA.fasta, где имена последовательности были для удобства изменены на мнемоники соответствующих им организмов, затем было проведено выравнивание алгоритмом muscle
muscle -align all_12S_rRNA.fasta -output alignment.fasta
Полученный файл alignment.fasta с помощью программы phylip-conventer.py был конвертирован в формат выравнивания phylip-relaxed (alignment.phy).
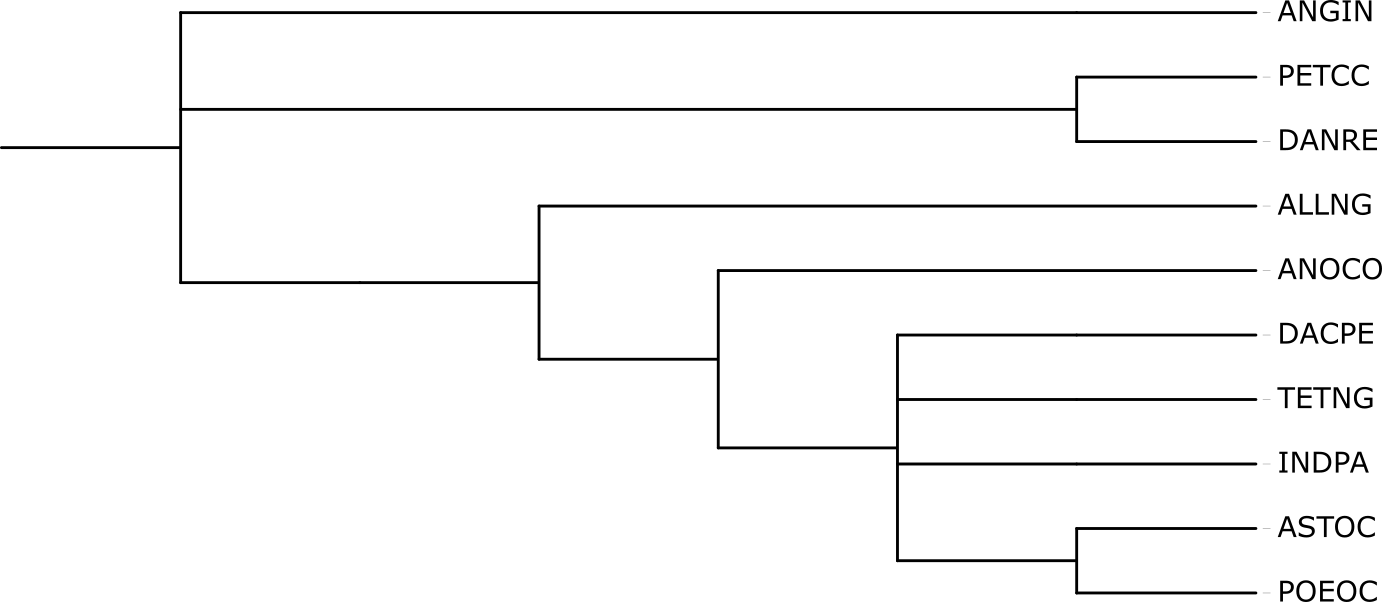
Рис.1. Филогенетическое дерево для некоторых видов инфракласса Teleostei, соответствующее реальной таксономии.
Укоренение во всех деревьях было проведено по ветви, ведущей к ANGIN, как и в практикуме 2, поскольку, согласно реальной таксономии ANGIN образует отдельную монофилетическую ветвь, и я использовал её в качестве внешней группы. Это позволило получить бифуркационное дерево, в котором корень расположен между ANGIN и остальными таксонами.
Реконструкция ерева с помощью IQ-Tree
С помощью команды iqtree -s alignment.phy (с параметрами по умолчанию) дерево было реконструировано. Здесь оно выглядит ближе к систематике, чем деревья, реконструированные программой FastME. ANGIN расположен отдельано, а ASTOC, POEOC и DACPE находятся в отдельной ветви. Остальная топология также варьируется.
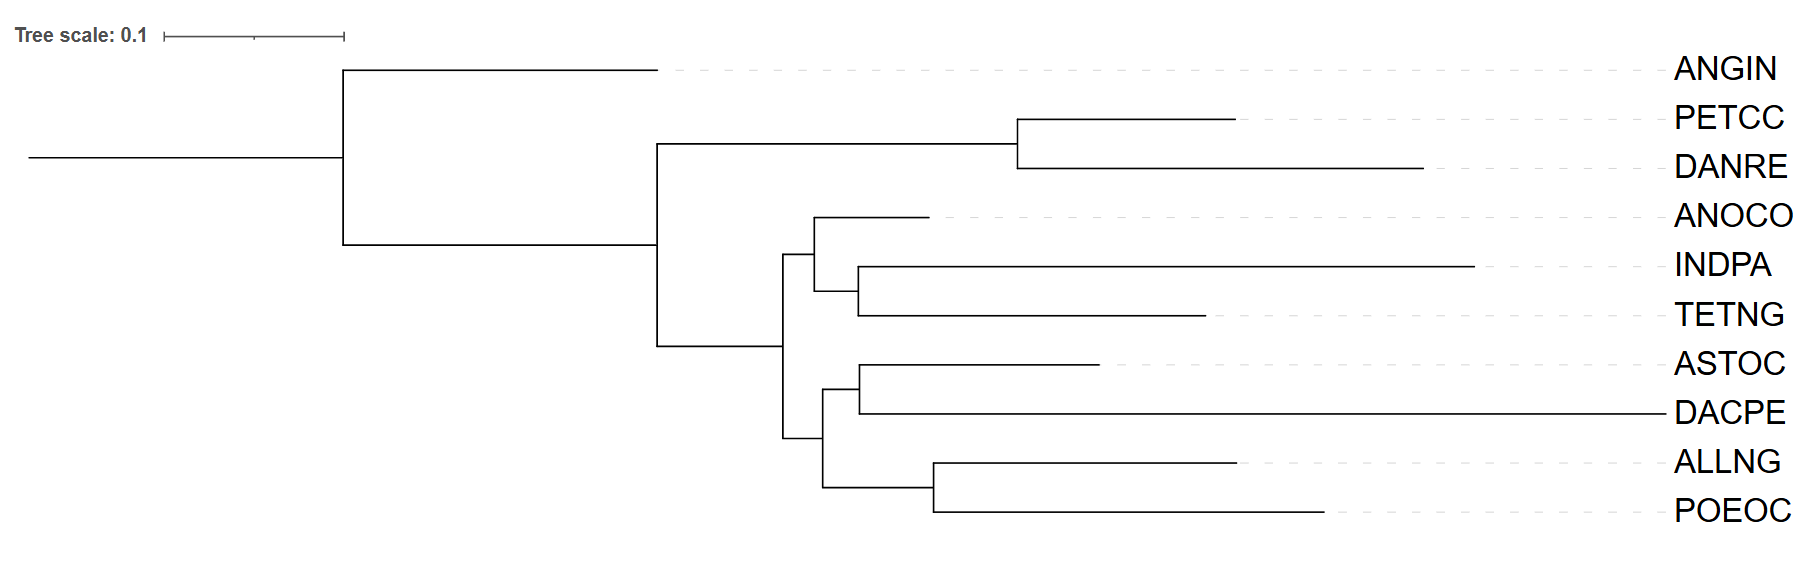
Рис. 2. Дерево IQ-Tree. Укоренение проведено в ветвь, ведущую к ANGIN. iqtree.txt
Сводка:
- Последовательности: выравнивание 12S rRNA для 10 видов Teleostei.
- Модель эволюции: автоматически выбрана программой по критерию BIC – mtZOA+I+G4 (смесь эмпирических митохондриальных матриц с учётом инвариантных сайтов и гетерогенности скоростей).
- Алгоритм реконструкции: максимальная вероятность (Maximum Likelihood).
- Программа: IQ‑TREE 2 (запуск с параметрами по умолчанию).
- Укоренение: выполнено в ту же ветвь – к ANGIN (внешняя группа).
Дерево укоренено на ветви, ведущей к виду ANGIN, который вынесен в качестве внешней группы (это обосновано тем, что в реальной таксономии ANGIN образует отдельную монофилетическую ветвь). Топология имеет следующий вид:
(ANGIN,((PETCC,DANRE),((ANOCO,(INDPA,TETNG)),((ASTOC, DACPE),(ALLNG,POEOC)))))
Была правильно восстановлена монофилия клады (DANRE,PETCC), однако вместо ожидаемой группы (ALLNG, (ANOCO, (DACPE, INDPA, TETNG, (POEOC, ASTOC)))) дерево IQ-Tree даёт три отдельные подклады:
- (ANOCO, (INDPA, TETNG)) – неверно, так как по таксономии ANOCO должен быть сестринским ко всей группе, включающей DACPE, INDPA, TETNG, POEOC и ASTOC, а не объединяться только с INDPA и TETNG.
- (ASTOC, DACPE) – не соответствует таксономии, где ASTOC образует кладу с POEOC, а DACPE является отдельной ветвью.
- (ALLNG, POEOC) – также ошибочно, поскольку ALLNG должен быть базальным по отношению к группе (ANOCO + все остальные), а POEOC должен быть с ASTOC.
Если сравнивать деревья IQ-Tree в текущем и втором практикумах, то отличия будут заметны. При построении дерева с опорой на выравнивание аминокислотных последовательнсотей цитохромов B клада (PETCC, DANRE) была расположена глубже по уровню, чем ANOCO, что не соответствует реальной таксономии. В остальных кладах тоже заметны видимые различия.
Однако, если сравнивать оба дерева с реальной таксономией организмов, то при одном и том же алгоритме построения дерево, основанное на выравнивании по последовательностям 12S rRNA оказалось хуже, чем дерево, построенное по выравниванию аминоки последовательностей цитохромов B. Стоит отметить, что скорость эволюции 12S rRNA действительно часто ниже, чем у белок-кодирующих генов. Однако такая закономерность не гарантирует лучшего филогенетического сигнала, что и показало сравнение при одинаковых алгоритмах выравнивания и построения.
Реконструкция дерева с помощью fastme по модели TN93
Филогенетическое дерево строилось в программе FastME с использованием модели нуклеотидных замен Тамуры–Неи (Tamura-Nei 1993, TN93). Эта модель оценивает эволюционное расстояние между последовательностями, учитывая неодинаковые частоты нуклеотидов и дифференцируя скорости замен для двух классов транзиций — между пуринами (A - G) и между пиримидинами (C - T) — относительно общего уровня трансверсий.
TN93 без бутстрепа
Использована следующая команда:
fastme -i alignment.phy -d T -o tn93.tree
Пояснения к опциям:
- -i alignment.phy – имя входного файла
- -o tn93.tree – имя выходного файла
- -d T – указание алгоритма Тамуры-Неи
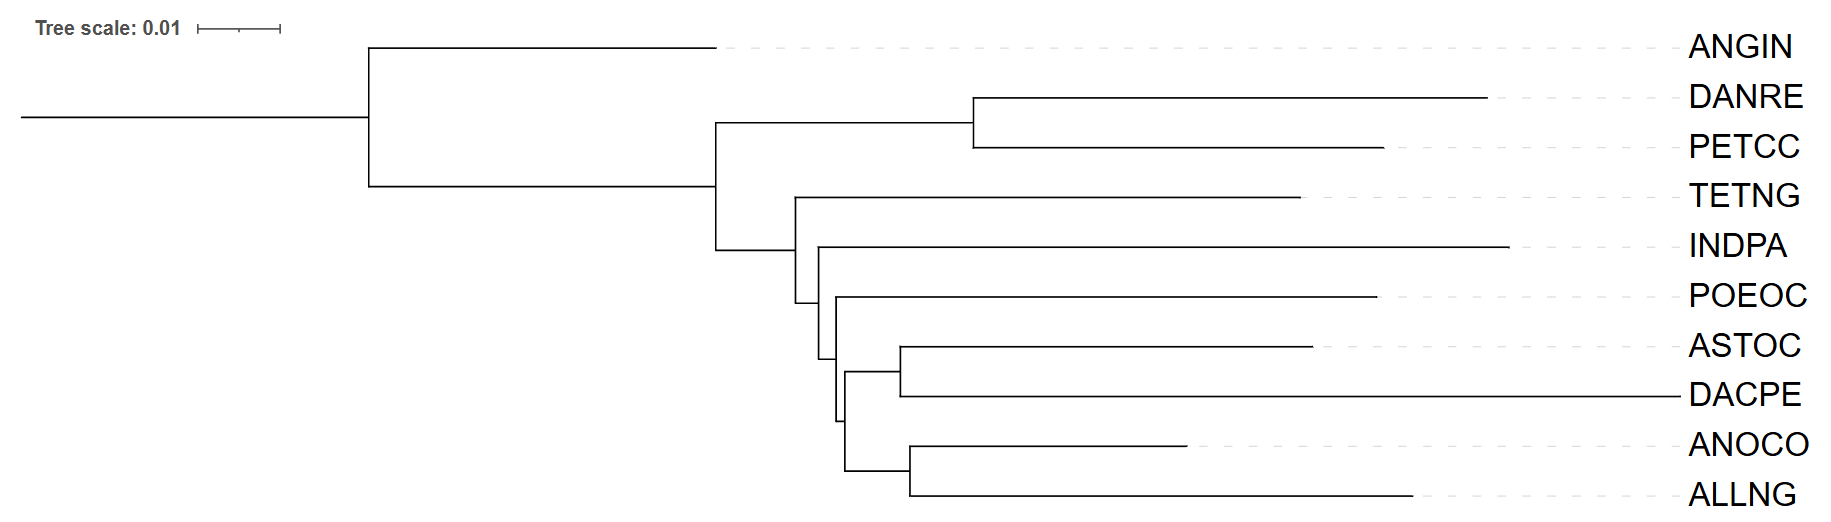
Рис. 3. Дерево, построенное программой FastME по модели TN93 без бутстрепа. tn93.txt
Сводка:
- Последовательности: выравнивание 12S rRNA для 10 видов Teleostei.
- Модель эволюции: TN93
- Алгоритм реконструкции: минимальная эволюция (ME)
- Программа: FastME.
- Укоренение: выполнено в ту же ветвь – к ANGIN (внешняя группа).
- Бутстреп: не проводился.
Аналогично прошлому дерево, DANRE и PETCC были верно объединены в одну монофилетическую кладу, что согласуется с таксономией. Однако при реконструкции все равно был допущен рядо ошибок. Например, ASTOC и DACPE сгруппированы вместе, тогда как по таксономии ASTOC должен быть с POEOC, а DACPE – отдельной ветвьью. INDPA и TETNG не являются сестринскими, в реальной таксономии они являются отдельными ветвяви внутри большой группы.
TN93 с 100 бутстрет-репликами
fastme -i alignment.phy -d T -o tn93.tree -b 100 -z 67
К команде для построения прошлого дерева были добавлены 2 опции:
- -b 100 – количество бутстреп-реплик
- -z 67 – сид для воспроизводимости результата
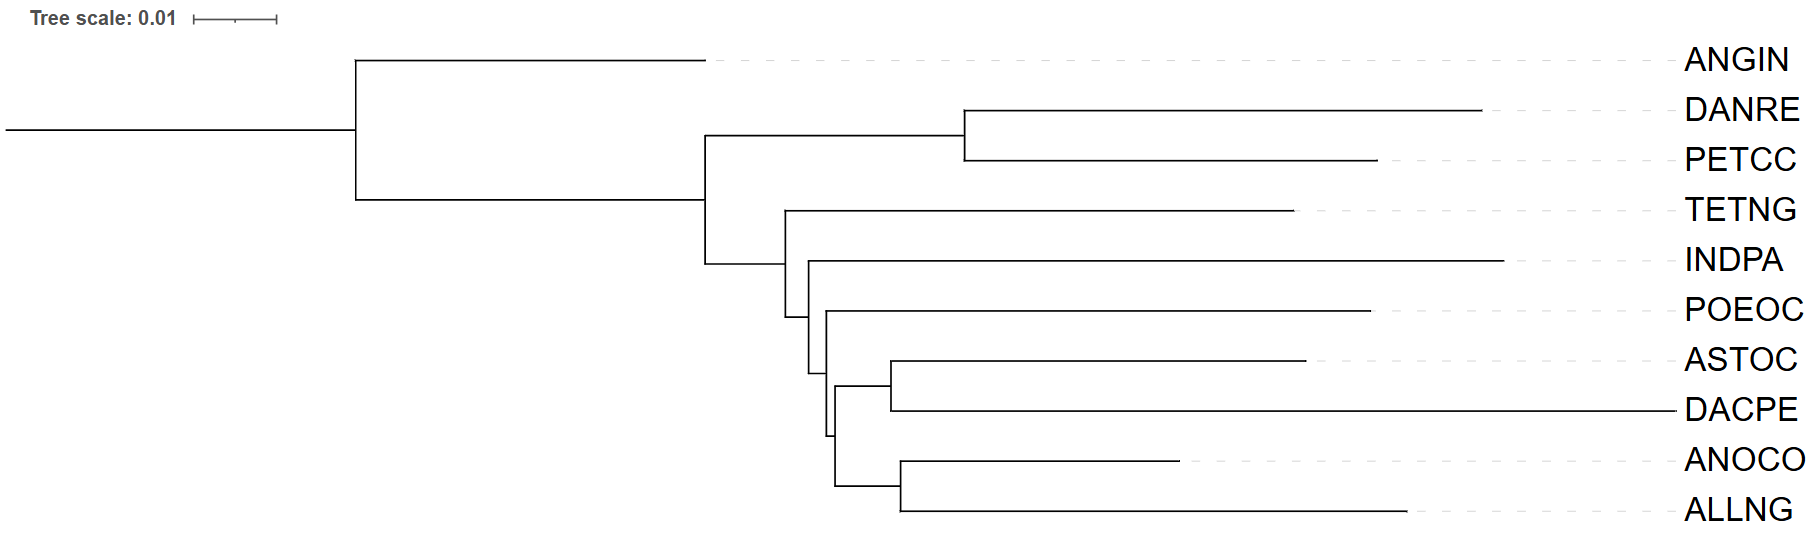
Рис. 4. Дерево, построенное программой FastME по модели TN93 с 100 бутстреп-репликами. tn93_b100.txt
Сводка:
- Последовательности: выравнивание 12S rRNA для 10 видов Teleostei.
- Модель эволюции: TN93
- Алгоритм реконструкции: минимальная эволюция (ME)
- Программа: FastME.
- Укоренение: выполнено в ту же ветвь – к ANGIN (внешняя группа).
- Бутстреп: 100 реплик.
Анализ поддержки
- Клада (DANRE, PETCC) имеет 100% поддержку – это единственный надёжно восстановленный узел, полностью соответствующий таксономии.
- Клада (ASTOC, DACPE) получила 78% – поддержка умеренная, но топология ошибочна
- Клада (ANOCO, ALLNG) – 69% – поддержка невысокая, но также ошибочна.
- Узел, объединяющий эти две ошибочные клады ((ASTOC, DACPE) и (ANOCO, ALLNG)), имеет поддержку всего 21%, что указывает на крайнюю ненадёжность этой группировки.
- Поддержка клады (POEOC + предыдущая группа) – 19% – также очень низкая.
Высокая поддержка наблюдается только для правильно восстановленной клады (DANRE, PETCC). Все остальные узлы, где топология расходится с таксономией, имеют низкую или умеренную поддержку, что подтверждает связь ошибок с низкой статистической поддержкой и, возможно, с недостаточным филогенетическим сигналом в последовательностях 12S рРНК для разрешения ветвей.
Стоит отметить, что реконструированные с помощью FastME с моделью TN93 без бутстрепа и с 100 бутстреп-репликами деревья имеют идентичную топологию. Это ожидаемо, поскольку бутстреп в FastME не изменяет алгоритм построения основного дерева, а лишь добавляет статистическую оценку поддержки для каждого внутреннего узла на основе множества псевдо-выборок из исходного выравнивания.
Выводы
Реконструкция по 12S рРНК с использованием IQ‑TREE и FastME даёт деревья, которые лишь частично согласуются с таксономией. Наиболее надёжно восстанавливается только клада (DANRE, PETCC), что подтверждается высокой бутстреп-поддержкой (100%) в анализе с репликами. Ветви, топология которых противоречит реальной таксономии, имеют низкие значения поддержки, тогда как правильно восстановленная клада получает максимальную поддержку. Это позволяет утверждать, что низкая поддержка коррелирует с ошибочными реконструкциями.